Kan Cistanche Deserticola-extract de immuunrespons bevorderen?
Mar 22, 2022
Contact:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Shuangshuang Feng a,1, Xiumei Yang a, Xiang Weng a,1, Bin Wang b, Ailian Zhang a,*
een Xinjiang Key Laboratory of Biological Resources and Genetic Engineering, College of Life Science and Technology, Xinjiang University, Urumqi, 830046, Xinjiang, China
b Key Lab of Medical Molecular Virology, School of Basic Medical Science, Shanghai Medical College, Fudan University, Shanghai, 200032, China
Etnofarmacologische relevantie:Kruidenpolysachariden hebben een groot immuunversterkend potentieel. Adjuvantia zijn een belangrijk hulpmiddel voor het ontwikkelen van effectieve vaccins. In onze vorige studie werd een in water oplosbaar polysacharide geëxtraheerd uit wildCistanchedeserticolaYC Ma vertoonde krachtige immunostimulerende activiteit.
Doel van de studie:In deze studie werden de immuunprofielen en werkzaamheid van waterige extracten van gecultiveerdeCistanchedeserticolaYC Ma (AECCD) op ICR-muizen tegen ovalbumine (OVA) werden onderzocht. In in vitro experimenten werd het mogelijke DC-activeringsmechanisme door AECCD geëvalueerd.
Materialen en methodes:AECCD werden geëxtraheerd met heet water, waarna de ruwe polysachariden werden neergeslagen met ethanol. Muizen werden eerst subcutaan geïmmuniseerd met alleen OVA (10 ug per muis) of OVA (10 ug per muis) met respectievelijk verschillende doses AECCD (200, 400 en 800 ug per muis) op dag 1 en 14 en de grootte en kinetiek van antilichamen en celgemedieerde reacties werden vervolgens beoordeeld.
Resultaten:AECCD wekte krachtige en langdurige IgG-responsen op met gemengde Th1/Th2-responsen en opwaarts gereguleerde niveaus van Th-geassocieerde cytokines (CD4 plus IL-4, CD4 plus IFN- en CD8 plus IFN-). Bovendien induceerde AECCD de sterke cellulaireimmuunantwoordgekenmerkt door verhoogde splenocytenproliferatie evenals de geactiveerde T-celrespons. Met name verbeterde AECCD de rijping van dendritische cellen (DC's) aanzienlijk en remde Tregs. In vitro-experimenten, voorlopige tests gaven aan dat AECCD DC-activering induceerde door fenotypische rijping, cytokinesectie en allostimulerende activiteit te bevorderen. Toll-like receptor 4 (TLR4) was een essentiële receptor voor DC's om AECCD direct te binden. De remmers van NF-KB verlaagden de expressieniveaus van CD40, CD80, CD86 en MHC-II en de productie van IFN-, TNF- en IL-6 via DCS.
conclusies:Ten slotte suggereerden deze bevindingen dat AECCD krachtige en duurzame antigeenspecifieke zou kunnen opwekkenimmuunreactiesdoor DC-activering, die betrokken was bij de regulatie van rijpingsmarkers en cytokine-expressie via de TLR4-gerelateerde NF-KB-route. De studie geeft aan dat AECCD een potentiële immunomodulator is.
trefwoorden:Polysacharide-adjuvans Gecultiveerd,Cistanchedeserticola, Immunomodulator, Dendritische cellen Toll-like receptor 4, NF-KB-signaleringsroute

Cistanche deserticolaextract bevorderenimmuunantwoord
1. Inleiding
Veel onderzoeken hebben gesuggereerd dat adjuvantia de werkzaamheid van vaccins tegen verschillende infectieziekten zoals hiv, COVID-19, griep en mond- en klauwzeer kunnen verbeteren (Cao et al., 2020; Giuseppe et al., 2018 ). Adjuvantia kunnen verschillende soorten en groottes vanimmuunreacties, dus een geschikt gekozen adjuvans kan deimmuunantwoordvereist voor een bepaald pathogeen of antigeen (Reed et al., 2013). Natuurlijke kruidachtige extracten worden al lang op grote schaal gebruikt in het dagelijks leven of de gezondheidszorg. In veel gevallen verbeterden de traditionele Chinese geneeskunde (TCM) en de actieve componenten ervan, met name meerdere van TCM-polysacchariden afgeleide adjuvantia, de werkzaamheid van vaccins aanzienlijk. TCM-polysachariden (Advax™, Astragalus polysacharide, Ginseng polysacharide, Lycium barbarum polysacharide en Ganoderma lucidum polysacharide) hadden verschillende voordelen ten opzichte van andere adjuvantia, zoals betere veiligheid, biocompatibiliteit, sterke immuunversterking en lage reactogeniciteit (Li en Wang, 2015; Schijns et al., 2020). Op TCM-polysaccharide gebaseerde verbindingen en formuleringen hebben daarom het potentieel als adjuvans-kandidaten.
Cistanche deserticolaYC Ma (Roucongrong in het Chinees) is een traditioneel Chinees medicijn dat is opgenomen in de Chinese Farmacopee en wordt al honderden jaren als versterkend voedingsmiddel gebruikt in China (Chinese Pharmacopoeia Commission, 1992). Moderne farmacologische studies hebben zijn meerdere farmacologische en immunomodulerende toepassingen aangetoond (Dong et al., 2007; Fu et al., 2017). In onze vorige studie hebben de ruwe polysachariden afgeleid van wildCistanchedeserticolaYC Ma bevorderde de antigeenspecifieke humorale en cellulaire reacties en reguleerde de rijping van dendritische cellen (DC's) (Zhang et al., 2018; Zhao et al., 2019). echter, wildeCistanchedeserticolaYC Ma is overmatig onderzocht en vermeld als bedreigde diersoorten.CistanchedeserticolaYC Ma is op grote schaal aangeplant en wordt veel gebruikt bij de ontwikkeling en toepassing van TCM-middelen. Het adjuvanspotentieel van gekweekteCistanchedeserticolaYC Ma is nog onduidelijk.
DCZ zijn essentiële regelgevers tegen infectieziekten. Nadat DC's zijn geactiveerd, interageren oppervlaktemoleculen en pro-inflammatoire cytokinen op DC's met overeenkomstige receptoren om T-cellen te activeren en antigeenspecifieke reacties op te wekken en de productie van cytokinen die adaptieveimmuunreacties(Banchereau en Steinman, 1998). Er is gemeld dat toll-like receptor 4 (TLR4) op DC's functioneert als een belangrijke polysacharidereceptor (Park et al., 2014; Qi et al., 2016). Inderdaad, veel polysachariden kunnen direct of indirect interageren met TLR4 op DC's om de stroomafwaartse nucleaire factor-kappa B (NF-KB) te activeren, die de expressie van verschillende pro-inflammatoire genen zoals IFN-, TNF- en IL{{11 kan induceren). }} en de ontstekingsreactie om pathogenen te elimineren (Tian et al., 2019; Zhou et al., 2017; Zhu et al., 2013). Daarom zijn DCZ en NF-KB uitgebreid bestudeerd als potentiële doelwitten voor ziektetherapie.
In de studie, met de in vivo (ICR-muizen) strategie, evalueerden we eerst de immunostimulerende effecten van waterige extracten van gekweekteCistanchedeserticolaYC Ma (AECCD) met verschillende doses (laag, gemiddeld en hoog) om eenimmuunantwoordtegen OVA en leg de in vitro manier uit om DC's en stroomafwaartse receptorgerelateerde routes te activeren. Met een muismodel hebben we onthuld dat AECCD de antilichaamrespons op lange termijn bevorderde met verhoogde IgG-titers en cellulaireimmuunantwoord. Belangrijk is dat AECCD Th-geassocieerde cytokines induceerde, vooral IFN-productie, wat leidde tot Th1-respons tegen infecties. Het inductie-effect was nauw gecorreleerd met een verbeterde DC-rijping en verminderde Tregs. Mechanistisch bevorderde AECCD DC-activering via TLR4-gerelateerde NF-KB-route. Samenvattend bevestigde de studie de krachtige adjuvante activiteit van AECCD bij het bevorderen van de adaptieve respons. De studie legde een basis voor de ontwikkeling van AECCD-polysacharideadjuvantia.
2. materialen en methoden
2.1. Reagentia
Ovalbumine (OVA), 3-(4, 5-dimethylthiazol-2-yl)-2, 5-difenyltetrazoliumbromide (MTT), polymyxine B (PMB), concanavaline A (ConA), lipopolysacharide (LPS), mitomycine C en 3,3′,5,5′-tetramethylbenzidine (TMB) werden verkregen van Sigma (VS). Foetaal runderserum (FBS) werd gekocht bij Biological Industries. Cell Counting Kit-8 (CCK-8) werd gekocht bij Biosharp (China). Geit-anti-muis IgG/IgG1/IgG2a-HRP-conjugaten waren van Southern Biotech (VS). Inject Alum was van Thermo Scientific Pierce (VS). GM-CSF was van Peprotech (VS). Fluorescerend gelabelde antilichamen (anti-CD3-PE, anti-CD4-APC, anti-CD8a-FITC, anti-CD44-PE, anti-CD62L-PE, anti-MHCII -FITC/Percp-cy5.5, anti-IL-4-PE, anti–IFN– -PE, anti-CD86-APC, anti-CD40-FITC/PE, anti- CD11c-PE/FITC, anti-CD80-APC), Golgistop, Cytofix/Cytoperm en Perm/Wash-buffer waren allemaal van BD Bioscience (VS). De regelgevende T-celkleuringskit was van eBiosciences (VS). TAK-242 was van MedchemExpress (Shanghai, China). PDTC was van Beyotime Biotechnology (China). De multi-analyt stroomassaykit was van Biolegend (VS).
2.2. Bereiding van AECCD C. deserticola
(Een voucher-exemplaar nr. CD10041602) werd geïdentificeerd door professor Jiang He. AECCD werd verkregen door waterextractie, ethanolprecipitatie en de deproteïnisatiemethode met enkele kleine wijzigingen (Zhang et al., 2018). Kortom, gecultiveerdCistanchedeserticolawerd eerst vele malen met water geëxtraheerd en vervolgens werden de ruwe polysachariden overnacht geprecipiteerd door toevoeging van ethanol volgens een volumeverhouding van 1:4. Vervolgens werden de verkregen ruwe polysachariden gedeproteïneerd door de Sevag-methode (Liu et al., 2012). Het totale suikergehalte bleek 76,82 procent te zijn met de anthron-zwavelzuurmethode (Dubois et al., 1951).
2.3. Infrarood spectroscopische analyse
Voor het analyseren van organische functionele groepen werd AECCD met KBr tot pellets geperst voor de infrarood (IR) spectra-meting. De IR-spectra van monsters werden bepaald binnen 4000-400 cm− 1.

Cistanchekruidenpromotenimmuunantwoord
2.4. In vivo experimenten
2.4.1. Dierlijke immunisatie
Vrouwelijke C57BL/6-muizen en ICR-muizen (6 weken oud) van Xinjiang Medical University (Urumqi, China) werden 3 dagen geacclimatiseerd. Alle experimentele procedures werden uitgevoerd in overeenstemming met de voorschriften van het Comité voor de Ethiek van Dierproeven van het Xinjiang Key Laboratory of Biological Resources and Genetic Engineering in Xinjiang University (BRGE-AE001).
Muizen werden subcutaan geïmmuniseerd met alleen OVA of OVA met verschillende concentraties AECCD en op dag 14 als volgt versterkt volgens verschillende groepen (6 muizen in elke groep): controlegroep (0,9 procent NaCl), OVA-groep ( 10 ug OVA), AECCD-H-groep (AECCD 800 ug), OVA/ AECCD-L-groep (10 ug OVA, AECCD 200 ug), OVA/AECCD-M-groep (10 ug OVA, AECCD 400 ug ), OVA/AECCD-H-groep (10 ug OVA, AECCD 800 ug) en OVA/Alum-groep (10 ug OVA, Alum 100 ug). Vaccinformuleringen in 100 L 0,9 procent NaCl werden op twee verschillende plaatsen (50 L op elke plaats) in de achterhuid van elke muis geïnjecteerd. Na vaccinatie werden bloedmonsters verzameld van de retro-orbitale plexus en sera werden verkregen en bewaard bij -80 ◦C voor verdere analyse van IgG-detectie. Splenocytenproliferatie en de detectie van cytokine, T-celsubsets, DCs-oppervlaktemarkers en Tregs werden uitgevoerd volgens hetzelfde vaccinatieprotocol.
2.4.2. Antilichaamanalyse
IgG-titers in serum tegen OVA werden bepaald door ELISA op dag 14, 28, 42 en 56 na de eerder genoemde primaire vaccinatie (Zhang et al., 2018). IgG1 en IgG2a werden gemeten op dag 21. De absorptie bij 450 nm/630 nm werd verkregen met behulp van een lezer (Bio-Rad, VS). De resultaten van antilichaamrespons worden uitgedrukt als IgG-titers en IgG1- en IgG2a-isotypen worden uitgedrukt als overeenkomstige absorpties.
2.4.3. Splenocytenproliferatietest
De splenocytproliferatietest bij muizen werd uitgevoerd met een CCK-8-testkit volgens de instructies van de fabrikant. Op dag 21 na de eerste immunisatie werden de splenocyten geïsoleerd uit de milt van geïmmuniseerde muizen en werden de erytrocyten na vermalen gelyseerd. Splenocyten (1 × 10⁶ cellen/putje) werden gestimuleerd met OVA (10 ug/ml), OVA323-339 (10 ug/ml), ConA (10 ug/ml) en LPS (10 ug/ml) voor twee dagen en blanco cellen werden als controle gebruikt. De proliferatie-activiteit werd uitgedrukt als stimulatie-index (SI), die de absorptieverhouding van een gestimuleerde cel tot een niet-gestimuleerde cel onder de golflengte van 570/630 nm berekende.
2.4.4. Analyse van fenotypering van T-lymfocyten in drainerende lymfeklieren en milt
Splenocytsuspensies van lymfeklieren en milt in geïmmuniseerde muizen werden verkregen volgens de hierboven genoemde methode (Zhang et al., 2018). Na het wassen werden monsters (1 x 10⁶ cellen/putje) 30 minuten gekleurd met antilichamen voor oppervlaktemarkers, waaronder anti-CD3-PE, anti-CD4-APC, anti-CD8a-FITC, anti-CD44-PE en anti-CD62L-PE. De niveaus van T-lymfocyten werden onderzocht met flowcytometrie. De resultaten van T-lymfocytfenotypes worden uitgedrukt als de percentages CD4 plus T-cel (procent), CD8 plus T-cel (procent), CD44 plus T-cel (procent) en CD62L plus (procent) T-cel.
2.4.5. Flowcytometrische analyse van cytokineniveaus
Voor de analyse van intracellulaire cytokinekleuring werden miltlymfocyten gescheiden en verwerkt tot een eencellige suspensie op dag 21 na de eerste immunisatie (Zhang et al., 2017). Monsters (2 x 10⁶ cellen/ml) gestimuleerd met OVA (10 ug/ml) werden 4 uur geïncubeerd. Golgistop werd vervolgens gedurende 12 uur toegevoegd. Monsters werden vervolgens gewassen, geblokkeerd en gekleurd met anti-CD4-APC- of anti-CD8a-FITC-antilichamen gedurende 30 minuten. Na fixatie en permeabilisatie met Cyto fix/Cytoperm werden de monsters vervolgens gelabeld met anti-IL-4-PE- of anti-IFN--PE-antilichamen. Stroomanalyse werd uitgevoerd om het niveau van cytokine te bepalen.
2.4.6. Schatting van DC-activering en Treg-cellen in een milt
Om te onderzoeken of DC's en Tregs een rol spelen in de verbeterdeimmuunantwoordtegen OVA werden op dag 3 na de eerste vaccinatie miltlymfocyten van geïmmuniseerde muizen geoogst voor de beoordeling van DC-rijping (Zhang et al., 2017). Cellen werden respectievelijk geblokkeerd en geïncubeerd met anti-CD11c-PE/FITC, anti-CD40-PE, anti-CD86-APC, anti-CD80-APC en anti-MHCII- FITC gedurende 30 minuten. Cellen werden geanalyseerd met flowcytometrie. Op dag 21 na de eerste immunisatie werden Tregs getest met de muisregulerende T-celkleuringskit. Splenocyten werden gekleurd met anti-CD4-FITC voor celoppervlaktemarkers, gevolgd door intracellulaire kleuring met anti-CD25-APC en anti-Foxp3-PE volgens de instructies van de fabrikant. Het niveau van CD4 plus CD25 plus Foxp3 plus cellen werd bepaald door middel van flowcytometrie.

Cistanche plant extract bevordert eenimmuunantwoord
2.5. In vitro experimenten
2.5.1. Generatie van DC's, levensvatbaarheid van cellen en endotoxineniveaus
DC's afgeleid van het beenmerg van C57BL/6-muizen werden verkregen volgens de eerder beschreven methode (Inaba et al., 1992). In het kort werden cellen gekweekt met RPMI-1640 compleet medium (20 ng/ml GM-CSF en 5 ng/ml IL-4). Na zes dagen werden alle gesuspendeerde cellen verzameld als onrijpe DC's voor daaropvolgende testen. Het percentage CD11c plus DC's in de niet-hechtende cellen werd bepaald op 94 procent door middel van flowcytometrie.
De cellevensvatbaarheid van DC's en splenocyten van muizen na AECCD werd gedetecteerd met de CCK{{0}}-kit volgens de instructies van de fabrikant. De cellen van DCZ en splenocyten werden verkregen en vervolgens gestimuleerd met verschillende concentraties AECCD (0, 10, 100, 400, 800 en 1600 ug/ml). De levensvatbaarheid van de cellen werd uitgedrukt als de verhouding van de absorptie van de behandelde groep tot de absorptie van de controlegroep x 100 procent.
Om het effect van endotoxine in AECCD uit te sluiten, nadat AECCD (100, 200 en 400 ug/ml) en LPS (100 ng/mL) 60 min waren voorbehandeld met PMB (100 ug/ml), DC's 105 cellen/ml) werden 12 uur geïncubeerd met voorbehandelde AECCD (100, 200 en 400 ug/ml) en LPS. Na de bovenstaande behandeling werden de niveaus van CD40, CD86, CD80 en MHCII geëvalueerd.
2.5.2. Analyse van DC-fenotype
De niveaus van co-stimulerende moleculen werden bepaald om rijping te evalueren door middel van in vitro experimenten. Op dag zes werden DC's gedurende 12 uur behandeld met AECCD (20, 100, 200 en 400 ug/ml) of LPS (100 ng/ml). Vervolgens werden DC's gekleurd met oppervlaktemoleculen en geanalyseerd met flowcytometrie.
2.5.3. Cytokineproductie door DC's in vitro
Het supernatant van de celkweek werd verzameld om het niveau van cytokinen te meten met behulp van een ELISA-kit of multi-analyt flow-assaykit met de CBA-methode. Alle experimentele stappen werden uitgevoerd volgens de instructies van de fabrikant.
2.5.4. Allogene gemengde lymfocytenreactie (MLR)
Splenocyten van BALB/c-muizen werden aseptisch verkregen in RPMI- 1640-medium (Zhang et al., 2018). Rijpe C57BL/6 DC's (gerijpt in aanwezigheid van verschillende concentraties AECCD of LPS) werden voorbehandeld met 50 ug/ml Mitomycine C gedurende 60 minuten bij 37 ◦C. Na het wassen werden DC's gemengd met splenocyten volgens een verhouding van 1:5 of 1:10 gedurende 2 dagen. Celproliferatie werd bepaald door MTT-assay.
2.5.5. Experimenten met neutralisatie van remmers
Om de TLR4-gerelateerde NF-KB-route te onderzoeken, werden verzamelde DC's op een 24-well-plaat geladen en vervolgens voorbehandeld met TAK-242 (5 M) of PDTC (5 M) , respectievelijk. Na 1- uur incubatie werden cellen gedurende 24 uur gestimuleerd met verschillende concentraties AECCD (100, 200 en 400 ug/mL) of LPS (100 ng/mL). Vervolgens werden de expressieniveaus van oppervlaktemoleculen en cytokinen in de kweeksupernatanten bepaald volgens de hierboven beschreven methoden.
3. Resultaten
3.1. FTIR-spectroscopie
De belangrijkste absorptiepieken van AECCD in Fig. 1 waren karakteristieke absorptiepieken van glycosidische structuren die overeenkomen met de O–H strektrilling bij 3342,95 cm− 1. De band bij 2933,54 cm− 1 had de karakteristieke zwakke absorptie van C–H rektrillingen. De piek bij 1657,39 cm− 1 werd toegeschreven aan O-H buigtrillingen. De absorptie bij 1411.00 cm− 1 werd toegeschreven aan O–H of C–H en C–O strektrillingen. De pieken bij 1018,38 cm− 1 gaven ook CO en C-O-C glycosidische bandtrillingen aan.

Fig. 1. FTIR-spectra van AECCD.
3.2. OVA-specifieke serumantilichaamrespons
Sera van de geïmmuniseerde muizen werden getest om te controleren op de aanwezigheid van gegenereerde antilichamen (IgG, IgG1 en IgG2a) tegen OVA. Zoals weergegeven in Fig. 2A, wekten IgG-titers in muizen geïmmuniseerd met OVA/AECCD-M een hoger totaal IgG op (titers: 220,000, 25{{30}}, 000 en 250,000) ten opzichte van die van de OVA-groep (titers: 100,000, 100,000 en 120,000), en was dicht bij de aluingroep (titers: 250,000, 250,000 en 270,000) op dag 28, 42 en 56 na de primaire vaccinatie. OVA/AECCD-M/H verhoogde de IgG1-niveaus significant in vergelijking met de OVA-groep (P <0,05) en="" het="" verschil="" tussen="" de="" ova/aeccd-m/h-groep="" en="" de="" aluin-groep="" was="" niet="" significant="" (p=""> 0,05). OVA / AECCD-M / H verhoogde ook aanzienlijk de IgG2a-niveaus in vergelijking met de OVA-groep en de aluingroep (Fig. 2B en C) (P <0,05). de="" verhoogde="" igg2a-spiegels="" kunnen="" een="" ziekte="" die="" igg2a="" vereist,="">immuunantwoord.

Fig. 2. OVA-specifieke antilichaamtiters en IgG-isotypen in serum. Serummonsters werden verzameld na primaire en boosterimmunisaties voor antilichamen met ELISA. (A) IgG-titers van gepoold serum werden beoordeeld op dagen 14, 28, 42 en 56 na de eerste immunisatie. (BC) IgG1 en IgG2a werden gemeten op dag 21 na de eerste immunisatie. Gegevens worden weergegeven als gemiddelde ± SD (n=6). *P < 0.05="" vergeleken="" met="">
3.3. Cellulaire immuunreacties
De proliferatie van miltlymfocyten werd onderzocht met MTT-assay onder herstimulatie met OVA of OVA{{0}}. Uit proliferatieanalyse bleek dat OVA/AECCD-M beide de proliferatie van splenocyten aanzienlijk verhoogden na blootstelling aan OVA, OVA323-339, Con A of LPS ten opzichte van de OVA-groep. OVA en OVA 323-339 verbeterden significant de hogere proliferatierespons dan die in de Alum-groep (Fig. 3) (P <>

Fig. 3. Splenocytproliferatie na AECCD-behandeling in vivo. Splenocyten werden opnieuw gestimuleerd met OVA, OVA323-339, ConA of LPS en gemeten met de MTT-methode op dag 21 na de eerste immunisatie. Celproliferatie werd getoond als stimulatie-index (SI): (A-B) Stimulatie-index van OVA en OVA323-339. (C-D) Stimulatie-index van ConA en LPS. Gegevens worden weergegeven als gemiddelde ± SD (n=5). *P<0.05, **p="" <="" 0.01,="" and="" ***p="" <="" 0.001="" compared="" to="" ova;="" #p="" <="" 0.05="" and="" ##p="" <="" 0.01="" compared="" to="" ova/="">
3.4. Activering van T-celsubsets in drainerende lymfeklieren en milt
Lymfeknopen en milt van geïmmuniseerde muizen werden geoogst om subsets van T-cellen te detecteren op dag 21 na primaire vaccinatie. Het percentage T-celsubsets (CD4 plus, CD8 plus, CD44 plus T-cellen) van lymfeklieren in de OVA / AECCD-M-groep was significant hoger dan dat van de OVA-groep en Alum-groep (Fig. 4A-D) (P < 0.05).="" de="" percentages="" t-celsubsets="" (cd4="" plus,="" cd8="" plus,="" cd44="" plus="" en="" cd62l="" plus="" t-cellen)="" in="" een="" milt="" waren="" significant="" hoger="" dan="" die="" van="" de="" ova-groep="" (fig.="" 4e-j)="" (p=""><0,05). deze="" bevindingen="" gaven="" aan="" dat="" aeccd="">immuunantwoord.


Fig. 4. Niveaus van T-celsubsets in drainerende lymfeklieren en milt in vivo. Op dag 21 na de eerste vaccinatie werden cellen van lymfeklieren en milt gebruikt om subsets van T-cellen te detecteren door middel van flowcytometrie. (A–D) Percentages CD4 plus, CD8 plus en CD44 plus T-cellen in lymfeklieren. (E-J) Percentages CD4 plus, CD8 plus, CD44 plus en CD62L plus T-cellen in een milt. Gegevens worden weergegeven als gemiddelde ± SD (n=5). *P < {{10}}.05,="" **p="">< 0.01="" en="" ***p=""><0,001 vergeleken="" met="" ova;="" #p="">< 0,05="" en="" ##p="">< 0,01="" vergeleken="" met="">
3.5. Cytokinen uitgescheiden door opnieuw gestimuleerde splenocyten in vivo
'Th1/Th2-cytokinen uit de milt van geïmmuniseerde muizen werden bepaald door intracellulaire kleuring op dag 21 na de eerste vaccinatie. De niveaus van CD4 plus IL-4, CD4 plus IFN- en CD8 plus IFN- in de OVA/AECCD-M-groep waren significant hoger dan die in de OVA-groep en de aluingroep (P <0 .05,="" afb.="" 5).="" de="" verschillen="" gaven="" aan="" dat="" aeccd="" th1/th2-responsen="" zou="" kunnen="" stimuleren,="" vooral="" door="" t-cellen="">immuunantwoord.

Fig. 5. Antigeen-specifieke cytokine-analyse in T-cellen in vivo. Splenocyten van geïmmuniseerde muizen werden op dag 21 na de eerste immunisatie onderzocht door middel van intracellulaire cytokinekleuring. (A) Percentages van CD4 plus IL-4. (BC) Percentages van CD4 plus IFN- en CD8 plus IFN-. Gegevens worden weergegeven als gemiddelde ± SD (n=5). *P < {{10}}.05="" en="" **p="">< 0,01="" vergeleken="" met="" ova;="" #p="">< 0,05="" vergeleken="" met="">
3.6. DC-rijping en Tregs in vivo
DC-activering kan adaptieve immuniteit initiëren. De effecten van AECCD op DC-rijping bij geïmmuniseerde muizen werden geëvalueerd op dag 3 na de eerste immunisatie. OVA/AECCD-M induceerde de hoogste niveaus van CD40, CD80, CD86 en MHCII op DC's ten opzichte van de OVA-groep, en het verschil tussen OVA/AECCD-M groep en aluingroep was significant (Fig. 6A-D) (P <0,05). de="" frequentie="" van="" cd4="" plus="" cd25="" plus="" foxp3="" plus="" tregs="" in="" de="" ova="" aeccd-m-groep="" was="" dramatisch="" lager="" dan="" die="" in="" de="" ova-groep="" (fig.="" 6e)="" (p=""><0,05). deze="" gegevens="" suggereerden="" dat="" aeccd="" dc's="" zou="" kunnen="" activeren="" en="" de="" treg-frequentie="" zou="" kunnen="">

Fig. 6. Effecten van AECCD op DC-rijping en Tregs in vivo. Splenocyten van ICR-muizen werden gebruikt om co-stimulerende moleculen op DC's en Tregs op dag 3 of 21 na de eerste immunisatie te detecteren. (A–D) Percentages van CD40, CD86, CD80 en MHCII op CD11c plus DC's. (E) Percentages van CD4 plus CD25 plus Foxp3 plus Tregs. Gegevens worden weergegeven als gemiddelde ± SD (n {{10}}). *P < 0,05="" en="" **p=""><0,01 vergeleken="" met="" ova;="" #p="">< 0,05="" en="" ##p="">< 0,01="" vergeleken="" met="">
3.7. Bepalingen van cytotoxiciteit en endotoxinebesmetting
Na de behandeling met verschillende concentraties AECCD gedurende 2 dagen werden de cellen van DCZ en splenocyten van muizen gebruikt om de potentiële cytotoxiciteit met de CCK-8-kit te bepalen. Er was geen significante geremde proliferatierespons in de cellevensvatbaarheid van DC's en splenocyten in vergelijking met die van de controlegroepen (Fig. 7A-B) (P> 0.05). Deze resultaten toonden aan dat AECCD bij een concentratie van 10-1600 ug/ml geen significante cytotoxiciteit voor DC's en splenocyten vertoonde in vergelijking met de controle (P > 0,05). De concentratie van AECCD in daaropvolgende experimenten werd dus ingesteld op minder dan 1600 ug/ml.
Om de interferentie van endotoxinebesmetting in de effecten van AECCD op DC-activering uit te sluiten, werd PMB, een antibioticum dat algemeen erkend wordt vanwege zijn LPS-neutraliserende effect, gebruikt om endotoxinebesmetting uit te sluiten (Morrison en Jacobs, 1976). Zoals weergegeven in Fig. 7C-F, vertoonden CD40, CD80, CD86 of MHC-II-expressieniveaus in met AECCD behandelde DC's in aanwezigheid van PMB geen significante verandering ( P > 0,05). Er werd echter een dramatische afname van CD40-, CD80-CD86- en MHC-II-expressieniveaus waargenomen in met LPS behandelde DC's in aanwezigheid van PMB (P <0,001). deze="" resultaten="" toonden="" aan="" dat="" aeccd="" vrij="" was="" van="">

Fig. 7. Cytotoxiciteit en effecten van PMB op geïnduceerde DC-rijping op AECCD. (A–B) DCS en splenocyten van muizen werden gedurende 2 dagen gekweekt in aanwezigheid van AECCD om de levensvatbaarheid van de cellen te bepalen met de MTT-methode. (C-F) DC's werden gedurende 12 uur geïncubeerd met AECCD of LPS voorbehandeld in de aanwezigheid / afwezigheid van PMB gedurende 6 0 minuten. De percentages van CD40, CD80, CD86 en MHCII op CD11c plus DC's werden bepaald. Gegevens worden weergegeven als gemiddelden ± SD (n =3). **P <0,01 en="" ***p=""><0,001 vergeleken="" met="" groep="" met="">
3.8. Fenotypische rijping en functionele activering van DC's in vitro
Op basis van bovenstaande immunisatie-experimenten werd de fenotypische rijping van DC's verder onderzocht na de behandeling met AECCD in vitro. Op dag 6 werden onrijpe DC's gestimuleerd met een bepaalde concentratie AECCD of LPS om oppervlaktemoleculen te analyseren. AECCD induceerde celrijping gekenmerkt door een significante toename van de percentages van CD4 0, CD80 CD 86 en MHC II op een dosisafhankelijke manier (P <0.001, fig.="" 8a-d).="" een="" vergelijkbare="" fenotypische="" rijping="" van="" dc's="" werd="" ook="" waargenomen="" na="" de="" stimulatie="" met="" 100="" ng/ml="" lps.="" uit="" de="" analysegegevens="" bleek="" dat="" aeccd="" de="" rijping="" van="" dc="">
Uit de bovenstaande resultaten verbeterde AECCD de fenotypische rijping van DC's. Om het effect van AECCD op de DC-functie in vitro te observeren, werd het vermogen van met AECCD behandelde DC's om allogene T-celproliferatie in een MLR te stimuleren bij een DC-splenocytverhouding van 1:5 of 1:1 0 onderzocht. DC's behandeld met verschillende concentraties AECCD induceerden significante T-celproliferatie in vergelijking met onbehandelde DC's (Fig. 8E-F) (P <0.001). dc-rijping="" zou="" de="" productie="" van="" cytokinen="" kunnen="" induceren.="" vervolgens="" werden="" de="" supernatanten="" van="" dc's="" behandeld="" met="" aeccd="" of="" lps="" gedetecteerd="" met="" elisa-kit.="" de="" niveaus="" van="" il="" -12="" en="" tnf-="" in="" de="" supernatanten="" van="" dc's="" waren="" op="" een="" dosisafhankelijke="" manier="" dramatisch="" verhoogd="" (p=""><0,001, fig.="">

Fig. 8. Fenotypische rijping en functionele activering van DC's na AECCD-behandeling in vitro. (A–D) Op dag 6 werden DC's gedurende 12 uur behandeld met een bepaalde concentratie AECCD of LPS. Cellen werden gekleurd met antilichamen en bepaald met flowcytometrie. Gemiddelde fluorescentie-intensiteit (MFI) van CD40, CD80, CD86 en MHCII op CD11c plus DC's. (E-F) C57BL/6 DC's behandeld met verschillende concentraties AECCD of LPS werden gedurende 2 dagen gemengd met splenocyten van BALB/c-muizen in een verhouding van 1:5 of 1:10 in een MLR. Celproliferatie werd bepaald door MTT-assay. (G-H) De kweeksupernatanten van DC's werden getest op IL -12 en TNF-a door ELISA-kit. Gegevens worden weergegeven als gemiddelden ± SD (n =3). *P < 0.05,="" **p=""><0.01 en="" ***p=""><0.001 vergeleken="" met="" onbehandelde="" dc's;="" #p="">< 0,05="" vergeleken="" met="">
3.9. TLR4, een receptor voor AECCD op DC's
DCZ kan cellulaire signalering initiëren door membraanreceptoren. Totbepalende rol van TLR4 bij deelname aan AECCD-behandelde DC-rijping, na de voorbehandeling met TLR4-remmer TAK-242 werden DC's gestimuleerd met een bepaalde concentratie AECCD en vervolgens werd de activeringsstatus van DC's onderzocht met een flowcytometer . De expressieniveaus van cytokinen in kweeksupernatanten werden geanalyseerd met een multi-analyt stroomassaykit. De opregulatie van CD4 0, CD8 0, CD 86 en MHC-II geïnduceerd door AECCD werd significant geremd door TLR4-routes te blokkeren (P <0, 01,="" fig.="" 9a-d).="" bovendien="" had="" het="" blokkeren="" van="" tlr4="" met="" tak-242,="" vergeleken="" met="" onbehandelde="" controle,="" een="" significanter="" remmend="" effect="" op="" de="" productie="" van="" ifn-,="" tnf-="" en="" il-6="" (p=""><0,01, fig.="" 9e-g)="">
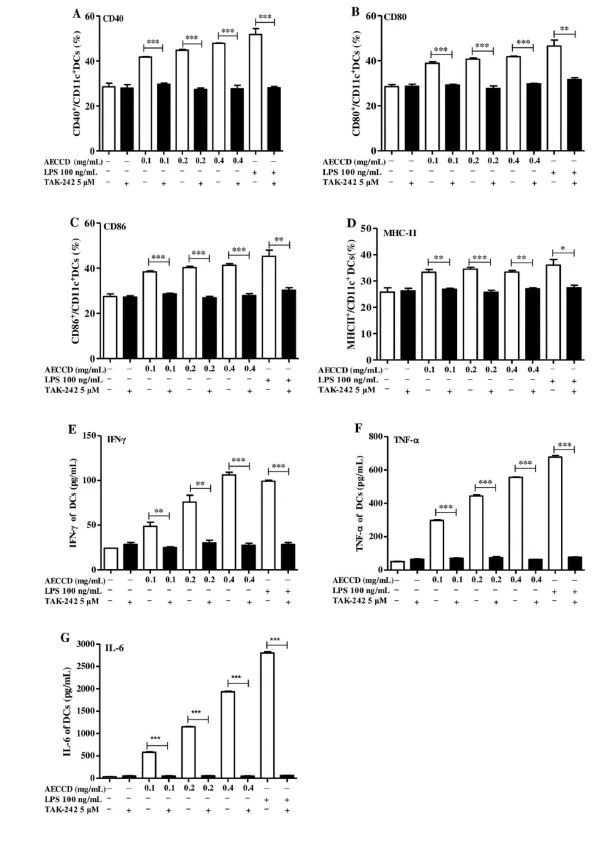
Fig. 9. Activering van TLR4-signalering in met AECCD behandelde DC's. Nadat onrijpe DC's gedurende 12 uur waren behandeld met AECCD in de afwezigheid of aanwezigheid van TAK-242, werd de fenotypische rijping onderzocht met een flowcytometer en werden de niveaus van cytokinen in supernatanten volgens de CBA-methode. (A–D) Percentages van CD40, CD80, CD86 en MHCII op CD11c plus DC's. (E–G) Niveaus van IFN-, TNF- en IL-6. Gegevens worden weergegeven als gemiddelden ± SD (n=3). **P < 0,01="" en=""><0.001 compared="" to="" the="" group="" with="">
3.10. DC-activering door AECCD via TLR4-gerelateerde NF-KB-route
Om te onderzoeken of de expressies van oppervlaktemoleculen en cytokinen van AECCD-behandelde DC's werden gereguleerd door NF-KB nadat onrijpe DC's die waren voorbehandeld met NF-KB-remmer PDTC gedurende 12 uur waren gestimuleerd met AECCD, werden de expressieniveaus van costimulerende moleculen en cytokinen gemeten door flowcytometer. De niveaus van CD40, CD80 CD86 en MHC-II geïnduceerd door AECCD waren significant verlaagd in vergelijking met de onbehandelde controle door het blokkeren van NF-KB-routes met overeenkomstige remmers (P < 0.001,="" afb.="" 10a–d).="" tegelijkertijd="" werd="" de="" expressie="" van="" ifn-,="" tnf-="" en="" il-6="" ook="" significant="" geremd="" door="" pdtc="" (p=""><0,05, fig.="">

Afb. 10. Betrokkenheid van NF-KB bij AECCD-geïnduceerde DC-activering. DC's werden gedurende 24 uur behandeld met AECCD in de afwezigheid of aanwezigheid van PDTC. (A–D) De percentages van CD40, CD80, CD86 en MHCII op CD11c plus DC's werden bepaald met flowcytometrie. (E–G) De niveaus van IFN-, TNF- en IL-6 in het supernatant werden bepaald met de CBA-methode. Gegevens worden weergegeven als gemiddelden ± SD (n=3). *P <0,05, **p=""><0,01 en="" ***p=""><0,001 vergeleken="" met="" de="" groep="" met="">
4. Discussie
Momenteel zijn verschillende polysachariden uit TCM onderzocht als adjuvantia voor vaccins voor mens en dier (Sun et al., 2018; Rey-Ladino et al., 2011). In deze studie werden de immuunmodulerende effecten van AECCD en het primaire activeringsmechanisme van DC's in vivo en in vitro onderzocht door een reeks experimenten om de adaptieveimmuunantwoordtegen OVA en de activeringsstatus van DCZ. In vivo-experimenten gaven aan dat AECCD de productie van OVA-specifieke IgG- en IgG-isotypen, verhoogde splenocytproliferatie en geïnduceerde T-celactivering en cytokinen (IL-4/IFN-) opmerkelijk bevorderde. Bovendien verbeterde AECCD de DC-rijping en vertoonde verminderde Tregs. Deze bevindingen suggereerden dat de functie van AECCD als efficiënt adjuvans werd gerealiseerd door DC-rijping te bevorderen en Tregs te remmen. In vitro-experimenten gaven aan dat AECCD fenotypische rijping van DC's, cytokinesectie en allostimulerende activiteit bevorderde via TLR4-gerelateerde NF-KB-route. Deze experimentele resultaten gaven aan dat AECCD een significant potentieel had als immuunversterkende stimulator.
Elk adjuvans heeft unieke immuunkenmerken tegen verschillende antigenen, wat aangeeft dat adjuvantia toepassingspotentieel hebben bij verschillende ziekten. Ten eerste werden de adjuvante eigenschappen van gelijktijdige toediening van AECCD met OVA getest door hun effecten op adaptieveimmuunantwoordin muizen. Veel studies toonden aan dat de immuunstimulerende activiteiten binnen een bepaald bereik recht evenredig waren met de dosis (Li et al., 2020; Reed et al., 2020; Zhang et al., 2017). Evenzo onthulde de analyse van antilichaam en isotype in de studie dat AECCD in een bepaald dosisbereik de OVA-specifieke IgG-, IgG1- en IgG2a-responsen verhoogde en dat de gemiddelde dosis AECCD de optimale dosis was. In daaropvolgende experimenten hebben we vooral het stimulerende effect van AECCD bij een optimale gemiddelde dosis onderzocht. De gemiddelde dosis AECCD verhoogde de proliferatierespons van splenocyten significant bij geïmmuniseerde muizen, wat aangeeft dat AECCD cellulaireimmuunreactiestegen OV. Deze resultaten suggereerden dat AECCD zowel humoraal als cellulair verbeterdeimmuunreacties, die geassocieerd waren met adjuvanspotentieel.
De opgewekte substantiële T-celactiviteit kan bevorderlijk zijn voor de uitroeiing van de ziekte. tijdens eenimmuunantwoordkunnen geactiveerde T-cellen secundaire lymfoïde weefsels bereiken, waaronder milt en lymfeklieren (Steinman, 2012). De gemiddelde dosis AECCD verbeterde effectief de werkzaamheid van het vaccin, aangezien het de CD4-, CD8-, CD44- en CD62L-T-celresponsen in drainerende lymfeklieren en milt aanzienlijk zou kunnen verbeteren. Geactiveerde CD8 T-cellen zorgden voor de uitroeiing van pathogenen door IFN- uit te scheiden. Geprolifereerde CD4 T-cellen werden gedifferentieerd in Th1-cellen en Th1-cellen. Th1-cellen scheidden Th1-cytokine af om de proliferatie van lymfocyten te stimuleren en Th2-cellen scheidden Th2-cytokine af om de antilichaamproductie te verbeteren (Seder et al., 2008). In de studie werden de niveaus van CD4 plus IL-4, CD4 plus IFN- en CD8 plus IFN- verhoogd door AECCD bij een gemiddelde dosis. AECCD veroorzaakte een gebalanceerde Th1/Th2-respons en regisseerde deimmuunantwoorddoor het cytokinenetwerk te veranderen.
Een adjuvans moet specifieke immuniteit induceren en de uitkomst vanimmuunantwoorddoor de status van DC's op verschillende punten te reguleren (Carrera Silva et al., 2013). De expressie van oppervlaktemoleculen op DC's is een cruciale indicator voor het evalueren van DC-rijping en is typisch gecorreleerd met T-lymfocytdifferentiatie (Steinman, 2012). In deze studie verbeterde AECCD de expressie van co-stimulerende moleculen en vergemakkelijkte het DC-rijping wanneer het werd gebruikt als een adjuvans tegen OVA. Dit kan een van de manieren zijn waarop AECCD humorale en cellulaire promootteimmuunreacties. Ondertussen verlaagde AECCD ook de frequentie van CD4 plus CD25 plus Foxp3 plus Tregs, wat zorgde voor een evenwichtige immuniteit na vaccinatie. Onze resultaten ondersteunden recente bevindingen dat verschillende polysachariden van TCM de regulator waren van DC-rijping (Bo et al., 2019; Li et al., 2015; Zhu et al., 2016).
Activering van adaptieveimmuunreactiesdoor polysacharide-adjuvantia wordt voornamelijk gemedieerd via hun herkenning door specifieke receptoren van DC's (Akira, 2004). DC's geactiveerd via TLR4-gerelateerde routes kunnen verschillende immunomodulatoren afscheiden als de kritische mediator tegen infecties (Akira, 2007). Daarom hebben we in daaropvolgende experimenten het moleculaire mechanisme van het stimulerende effect van AECCD op DC's in vitro onderzocht. Om de cytotoxiciteit van AECCD te observeren, werd eerst de cellevensvatbaarheid van DC's en splenocyten van muizen bepaald. AECCD bij 10-1600 ug/ml vertoonde geen cytotoxiciteit voor DC's en splenocyten. Om LPS-besmetting uit te sluiten, hebben we AECCD voorbehandeld met PMB. De expressieniveaus van CD40, CD80 CD86 en MHC-II in met AECCD behandelde DC's waren niet verlaagd, maar PMB remde effectief de expressie van co-stimulerende moleculen in met LPS behandelde DC's. Dit toonde aan dat AECCD vrij was van endotoxinebesmetting. Vervolgens werd de activatiestatus van DC's verder onderzocht. Net als met LPS-behandelde DC's, verhoogden AECCD-behandelde DC's op een dosisafhankelijke manier de niveaus van CD40, CD80, CD86 en MHC II, evenals de productie van het pro-inflammatoire cytokine, wat een parameter van functionele rijping van DC's. In een MLR werd het proliferatievermogen van allogene T-cellen geëvalueerd in met AECCD behandelde DC's. AECCD zou allogene T-cellen kunnen primen en activeren. DC's werden eerst voorbehandeld met Mitomycine C en vervolgens grondig gewassen om dit reagens te verwijderen, dus de effecten van AECCD op DC's werden waarschijnlijk niet toegeschreven aan de mitogene activiteit. Experimentele gegevens onthulden dat fenotypische rijping en functionele activering van DC's kunnen worden toegeschreven aan de stimulatie van AECCD.
Een aantal TCM-polysacchariden zou de rijping van DC's via TLR4 kunnen stimuleren. NF-KB als lid van TLR4-gerelateerde stroomafwaartse route speelt een belangrijke rol bij het reguleren van de fenotypische en functionele rijping van DC's en het induceren van de expressie van verschillende genen die betrokken zijn bijimmuunreacties(Qi et al., 2016; Re en Strominger, 2001; Wei et al., 2016; Zhu et al., 2013). Door middel van in vitro experimenten ontdekten we dat AECCD de rijping van DC bevorderde en dat TAK-242 (TLR4-remmer) en PDTC (NF-KB-remmer) de expressieniveaus van CD40, CD80, CD86 en MHC verlaagden. -II en de secretieniveaus van IFN-, TNF- en IL-6 op met AECCD behandelde DC's. Deze bevindingen gaven aan dat TLR4 en NF-KB betrokken waren bij AECCD-geïnduceerde DC-activering en cytokinesecretie. Deze resultaten waren consistent met eerder gerapporteerde onderzoeken omdat AECCD als adjuvans de antigeentargeting op DC's verbeterde.
Samenvattend toonden onze resultaten aan dat AECCD duurzame en Th1 / Th2-responsen induceerde, met name T-celgemedieerdeimmuunantwoordtegen OV. AECCD activeerde DC's via de TLR4-gemedieerde NF-KB-route, waardoor de productie van immunomodulatoren en allogene T-celproliferatie werd verbeterd. AECCD kan worden gebruikt als een effectief adjuvans bij de ontwikkeling van vaccins. Er zal echter een nauwkeurige componentenanalyse worden uitgevoerd om te bepalen welke component in AECCD-geactiveerde DC's. Met een focus op de mechanismen met betrekking tot hoe AECCD de immunogeniciteit verhoogt, inclusief optimalisatie van adjuvansformuleringen en de route van vaccintoediening, zullen we de immunomodulerende componenten en de specifieke adjuvante eigenschappen van AECCD verder onderzoeken met het oog op het ontwerpen van effectieve vaccinadjuvantia tegen infectieziekten.

Cistanche voordelen van deserticolapromoot eenimmuunantwoord
Bijdragen van auteurs
Verwerving, analyse en interpretatie van gegevens: Shuangshuang Feng, Xiumei Yang, Xiang Weng. Het schrijven van origineel ontwerp: Shuangshuang Feng, Xiang Weng.
Financiering acquisitie:Ailian Zhang.
Onderzoek:Ailian Zhang.
Methodologie:Ailian Zhang, Bin Wang.
Overzicht:Ailian Zhang.
Verklaring van concurrerend belang
De auteurs hebben geen belangenconflicten met betrekking tot deze studie.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China [subsidienummers 31960164 en 31660259] De financiers hadden geen rol bij het ontwerp van de studie, het verzamelen en analyseren van gegevens, de beslissing om te publiceren, de voorbereiding of het manuscript.
De auteurs bedanken prof. Xingguo Zheng en Jiang He (Urumqi, China) voor het vriendelijk verstrekken van materialen en identificatie.
Referenties
Akira, S., 2004. Tolreceptorfamilies: structuur en functie. Semin. Immunol. 16, 1-2.
Akira, KS, 2007. Signalering naar NF-KB door tolachtige receptoren. Trends Mol. Med. 18, 156-163.
Banchereau, J., Steinman, RM, 1998. Dendritische cellen en de controle van immuniteit. Natuur 392, 245-252.
Bo, R., Liu, Z., Zhang, J., Gu, P., Ou, N., Sun, Y., Hu, Y., Liu, J., Wang, D., 2019. mechanisme van Lycium barbarum polysachariden liposomen op het activeren van muizen dendritische cellen. Koolhydraat. Polym. 205, 540-549.
Cao, P., Wu, S., Wu, T., Deng, Y., Zhang, Q., Wang, K., Zhang, Y., 2020. De belangrijke rol van polysachariden uit een traditioneel Chinees medicijn - Longreiniging en ontgiftende afkooksel tegen de COVID-19-pandemie. Koolhydraat. Polym. 240,m116346
Carrera Silva, EA, Chan, PY, Joannas, L., Errasti, AE, Gagliani, N., Bosurgi, L., Jabbour, M., Perry, A., Smith-Chakmakova, F., Mucida, D., Cheroutre, H., BurstynCohen, T., Leighton, JA, Lemke, G., Ghosh, S., Rothlin, CV, 2013. Van T-cellen afgeleid
proteïne S maakt gebruik van TAM-receptorsignalering in dendritische cellen om de grootte van de te regelenimmuunantwoord. Immuniteit 39, 160-170.
Chinese Farmacopee Commissie, 1992. Chinees ministerie van Volksgezondheid Drug Standard Chinese Herbal Medicine, volume één. Pers van de Chinese Farmacopeecommissie, Peking, p. 1.
Dong, Q., Yao, J., Fang, J., Ding, K., 2007. Structurele karakterisering en immunologische activiteit van twee in koud water extraheerbare polysachariden uitCistanchedeserticolaYC Ma. Koolhydraat. Onderzoek 342 (10), 1343-1349.
Dubois, M., Gilles, K., Hamilton, JK, Rebers, PA, Smith, F., 1951. Een colorimetrische methode voor de bepaling van suikers. Natuur 168, 167.
Fu, Z., Fan, X., Wang, X., Gao, X., 2018.CistanchesHerba: een overzicht van zijn eigenschappen op het gebied van chemie, farmacologie en farmacokinetiek. J. Ethnopharmacol. 219, 233-247.
Giuseppe, DG, Rino, R., Didierlaurent, AM, 2018. Correlaten van adjuvans: een overzicht van adjuvantia in gelicentieerde vaccins. Semin. Immunol. 39, 14–21.
Inaba, K., Inaba, M., Romani, N., Aya, H., Deguchi, M., Ikehara, S., Muramatsu, S., Steinman, RM, 1992. Generatie van grote aantallen dendritische cellen van muis beenmergculturen aangevuld met granulocyt/macrofaag koloniestimulerende factor. J. Exp. Med. 176, 1693-1702.
Li, P., Wang, F., 2015. Polysacchariden: kandidaten voor veelbelovende vaccinadjuvantia. Drug Discov Ther 9, 88-93.
Li, X., Zhao, R., Li, H., De, Z., Wu, H., 2012. Deproteïnisatie van polysachariden uit de stigma maydis door de Sevag-methode. Adv. Mater. Onderzoek 340, 416-420.
Li, J., Li, J., Zhang, F., 2015. De immunoregulerende effecten van Chinese kruidengeneeskunde op de rijping en functie van dendritische cellen. J. Ethnopharmacol. 171, 184-195.
Li, T., Zhang, L., Jin, C., Xiong, Y., Cheng, YY, Chen, K., 2020. Granaatappelbloemextract reguleert bidirectioneel de proliferatie, differentiatie en apoptose van 3T3- L1-cellen door regulatie van PPAR-expressie gemedieerd door de PI3K-AKT-signaleringsroute. biomed. apotheker. 131, 110769.
Morrison, DC, Jacobs, DM, 1976. Binding van polymyxine B aan het lipide A-gedeelte van bacteriële lipopolysacchariden. Immunochemie 13, 813-818.
Park, MJ, Ryu, HS, Kim, JS, Lee, HK, Kang, JS, Yun, J., Kim, SY, Lee, MK, Hong, JT, Kim, Y., 2014. Platycodon grandiflorum polysaccharide induceert dendritische cel rijping via TLR4-signalering. Voedsel Chem. Toxicol. 72, 212-220.
Qi, C., Guo, Y., Zhou, W., Zhang, Y., 2016. Toll-like receptor 4-gerelateerde immunostimulerende polysachariden: primaire structuur, activiteitsrelaties en mogelijke interactiemodellen. Koolhydraat. Polym. 149, 186-206.
Re, F., Strominger, JL, 2001. Toll-like receptor 2 (TLR2) en TLR4 activeren op differentiële wijze menselijke dendritische cellen. J. Biol. Chem. 276, 37692-37699.
Reed, SG, Orr, MT, Fox, CB, 2013. Sleutelrollen van adjuvantia in moderne vaccins. nat. Med. 19, 1597-1608.
Reed, SG, Tomai, M., Gale, MJ, 2020. Nieuwe horizonten in adjuvantia voor vaccinontwikkeling. Curr. Opin. Immunol. 65, 97-101.
Rey-Ladino, J., Ross, AG, Cripps, AW, Mcmanus, DP, Quinn, R., 2011. Natuurlijke producten en de zoektocht naar nieuwe vaccinadjuvantia. Vaccin 29, 6464-6471.
Schijns, V., Fernandez ´ Ejada, A., Barjaktarovi, A., Bouzalas, I., Lavelle, EC, 2020. Modulatie vanimmuunreactieshet gebruik van adjuvantia om therapeutische vaccinatie te vergemakkelijken. Immunol. Rev. 296, 169-190.
Seder, RA, Darrah, PA, Roederer, M., 2008. T-celkwaliteit in geheugen en bescherming: implicaties voor vaccinontwerp. nat. Rev. Immunol. 8, 247-258.
Steinman, RM, 2012. Beslissingen over dendritische cellen: verleden, heden en toekomst. Ann. Rev. Immunol. 30, 1-22.
Sun, B., Yu, S., Zhao, D., Guo, S., W, X., Zhao, K., 2018. Polysacchariden als vaccinadjuvantia. Vaccin 36, 5226-5234.
Tian, H., Liu, Z., Pu, Y., Bao, Y., 2019. Immunomodulerende effecten uitgeoefend door Poria Coco's polysachariden via TLR4/TRAF6/NF-KB-signalering in vitro en in vivo. biomed. apotheker. 112, 108709.
Wei, W., Xiao, HT, Bao, WR, Ma, DL, Leung, CH, 2016. TLR-4 kan signaalroutes van Astragalus-polysaccharide RAP-geïnduceerde cytokine-expressie van RAW264.7-cellen bemiddelen. J. Ethnopharmacol. 179, 243-252.
Zhang, A., Yang, Y., Wang, Y., Zhao, G., Yang, X., Wang, D., Wang, B., 2017. Adjuvansactieve waterige extracten van Artemisia rupestris L. verbeterenimmuunreactiesvia de TLR4-signaleringsroute. Vaccin 35, 1037-1045
Zhang, A., Yang, X., Li, Q., Yang, Y., Zhao, G., Wang, B., Wu, DC, 2018. Immunostimulerende activiteit van met water extraheerbare polysachariden uitCistanchedeserticolaals een plantenadjuvans in vitro en in vivo. PloS One 13, e0191356.
Zhao, B., Lian, J., Wang, D., Li, Q., Zhang, A., 2019. Evaluatie van waterige extracten vanCistanchedeserticolais een polysacharideadjuvans voor seizoensgriepvaccin bij jonge volwassen muizen. Immunol. Let. 213, 1–8.
Zhou, L., Liu, Z., Wang, Z., Yu, S., Long, T., Zhou, X., Bao, Y., 2017. Astragalus-polysacchariden oefenen immunomodulerende effecten uit via TLR4-gemedieerd MyD88-afhankelijke signaalroutes in vitro en in vivo. Sci Rep-UK 7, 44822.
Zhu, J., Zhang, Y., Shen, Y., Zhou, H., Yu, X., 2013. Lycium barbarum-polysacchariden induceren Toll-like receptor 2- en 4-gemedieerde fenotypische en functionele rijping van muizen dendritische cellen via activering van NF-KB. Mol. Med. Rep. 8, 1216-1220.
Zhu, N., Lv, X., Wang, Y., Li, J., Liu, Y., Lu, W., Yang, L., Zhao, J., Wang, F., Zhang, LW, 2016 Vergelijking van immunoregulerende effecten van polysacchariden van drie natuurlijke kruiden en cellulaire opname in dendritische cellen. Int. J. Biol. Macromol. 93, 940-951.