Neuroprotectief potentieel van isothiocyanaten in een in vitro model van neuro-infammatie
Mar 27, 2022
Contact:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Tiziana Latronico1 · Marilena Larocca2 · Serafna Milella1 · Anna Fasano1 · Rocco Rossano2 · Grazia Maria Liuzzi1
Ontvangen: 10 juli 2020 / Geaccepteerd: 25 oktober 2020 / Online gepubliceerd: 16 november 2020
© De Auteur(s) 2020
Cistanche kruidenpoeder functie: heeft een zeer goedeneuroprotectief effect
Abstract
Isothiocyanaten (ITC's), aanwezig als glucosinolaatprecursoren in kruisbloemige groenten, hebben aangetoond datontstekingsremmend, antioxiderende en anticarcinogene activiteiten. Hier vergeleken we de effecten van drie verschillende ITC's op de ROS-productie en op de expressie van matrixmetalloproteïnase (MMP)-2 en -9, die belangrijke pathogenetische factoren van verschillende neurologische ziekten vertegenwoordigen. Primaire kweken van rattenastrocyten werden geactiveerd door LPS en gelijktijdig behandeld met verschillende doses allylisothiocyanaat (AITC), 2-fenethylisothiocyanaat (PEITC) en 2-sulforafaan (SFN). De resultaten toonden aan dat SFN en PEITC in staat waren om de door H2O2 geïnduceerde ROS-productie tegen te gaan. De zymografische analyse van supernatanten van celculturen toonde aan dat PEITC en SFN de meest effectieve remmers van MMP-9 waren, terwijl alleen SFN de MMP-2-activiteit significant remde. PCR-analyse toonde aan dat alle gebruikte ITC's de expressie van zowel MMP-2 als MMP-9 significant remden. Het onderzoek naar de door mitogeen geactiveerde proteïnekinase (MAPK)-signaleringsroute toonde aan dat ITC's MMP-transcriptie moduleren door de extracellulair-gereguleerde proteïnekinase (ERK)-activiteit te remmen. De resultaten van deze studie suggereren dat ITC's veelbelovende nutraceutische middelen kunnen zijn voor de preventie en complementaire behandeling van neurologische ziekten die verband houden met MMP-betrokkenheid.
TrefwoordenAntioxidant · Ontstekingsremmend · Isothiocyanaat · Matrixmetalloproteïnasen · Neurodegeneratieve ziekten
Invoering
Neuro-inflammatie is een complexe reactie op hersenletsel waarbij een cascade van biochemische gebeurtenissen betrokken zijn die leiden tot de activering van de cellen van het centrale zenuwstelsel (CZS). De afwijkende activering van astrocyten brengt hun neuroprotectieve rol in gevaar, wat leidt tot het vrijkomen van ontstekingsmediatoren, zoals reactieve zuurstofsoorten (ROS), stikstofmonoxide (NO), cytokinen, chemokinen en matrixmetalloproteïnasen
(MMP's).
MMP's zijn een grote familie van neutrale, Zn2 plus-afhankelijke endopeptidasen die als belangrijkste doelwitten de componenten van de extracellulaire matrix (ECM) zoals fibronectine, collageen, elastine en laminine hebben (Latronico en Liuzzi 2017).
Tiziana Latronico
tiziana.latronico@uniba.it
Afdeling Biowetenschappen, Biotechnologie en Biofarmacie, Universiteit van Bari "Aldo Moro",
Bari, Italië
Afdeling Wetenschappen, Universiteit van Basilicata, Potenza,
Italië
In het CZS zijn MMP's betrokken bij verschillende fysiologische reacties, zoals morfogenese, omzet en hermodellering van ECM, embryogenese en wondherstel; wanneer MMP's echter ontsnappen aan regulerende mechanismen, worden ze schadelijk (Rosenberg 2009; Agrawal et al. 2008).
In dit opzicht is het bekend dat veranderingen in MMP-expressie en -activiteit belangrijke pathogenetische gebeurtenissen zijn bij verschillende neurologische aandoeningen (Latronico en Liuzzi 2017; Mastroianni en Liuzzi 2007; Brkic et al. 2015). Experimenteel bewijs heeft gesuggereerd dat van de MMP's gelatinasen A (MMP-2) en B (MMP-9) in het bijzonder betrokken zijn bij neuro-inflammatie, aangezien hun opregulatie de integriteit van de bloed-hersenbarrière (BBB) in gevaar kan brengen. Dit leidt tot verhoogde rekrutering en infiltratie van immuunperifere bloedcellen in het hersenparenchym, waardoor het ontstekingsproces wordt voortgezet dat de oorzaak is van progressief neuronaal verlies en verminderde neuronale functie (Rivest 2009). Verschillende in vitro en in vivo onderzoeken hebben aangetoond dat ROS-productie een van de factoren is die betrokken zijn bij de opregulatie van MMP-9-expressie in hersencellen via mitogeen-geactiveerde proteïnekinase (MAPK) signaalroute-afhankelijke mechanismen (Hsieh en Jan 2013).
Op basis van dit bewijs is het duidelijk dat neerwaartse regulatie van neurotoxische factoren, resulterend in verminderde neuro-inflammatoire reacties, een effectieve therapeutische strategie kan zijn om het ontstaan of de progressie van hersenziekten te voorkomen of te verlichten.
De laatste jaren is de biomedische interesse in het neurologische veld steeds meer gericht op het onderzoek naar natuurlijke verbindingen die de processen geassocieerd met neuro-inflammatoire reacties kunnen moduleren. In dit opzicht hebben verschillende onderzoeken aangetoond dat fytochemische verbindingen, zoals polyfenolen, isothiocyanaten (ITC's) en andere, neuroprotectief potentieel hebben dat ook voortkomt uit hun vermogen om de expressie van MMP's te remmen en ROS-productie tegen te gaan (Dinkova-Kostova en Kostov 2012; Liuzzi et al. 2007, 2011).
Isothiocyanaten zijn metabolieten die worden geproduceerd door verschillende planten die behoren tot de Brassicaceae-families als verdedigingssysteem tegen aanvallen door pathogenen (Bones en Rossiter 2006). Ze ontstaan door de enzymatische afbraak van glucosinolaten (GSL) door het enzym myrosinase. ITC's zijn aanwezig in veelgebruikte kruisbloemige groenten zoals broccoli, spruitjes, kool, raap, mierikswortel, koolrabi, mosterd, radijs, waterkers en boerenkool. Hun hoeveelheden in voedsel zijn zeer variabel en afhankelijk van voedselverwerking en -bereiding.
Onlangs is aangetoond dat ITC's een verscheidenheid aan therapeutische effecten hebben, waaronder antioxiderende, antibacteriële, ontstekingsremmende en chemopreventieve werking (Dufour et al. 2015; Marzocco et al. 2015).
De beschermende activiteit van ITC's wordt uitgevoerd door de modulatie van verschillende signaalroutes die betrokken zijn bij ontgifting, ontsteking, apoptose en celcyclusregulatie. Verschillende bewijzen geven aan dat de anti-carcinogene en ontstekingsremmende eigenschappen van ITC's voornamelijk kunnen worden toegeschreven aan hun vermogen om de aan de nucleaire factor erytroïde 2-gerelateerde factor 2 (Nrf2)-route te activeren. Nrf2 is een redox-gevoelige transcriptiefactor die in aanwezigheid van elektrofiele middelen en oxidatieve stressomstandigheden zich verplaatst naar de kern waar het de antioxidantresponselementen (ARE) bindt, waardoor de expressie wordt geïnduceerd van cytoprotectieve genen die betrokken zijn bij ontgifting en bij de modulatie van oxidatieve omstandigheden en ontstekingsprocessen (Heiss et al 2001). In dit opzicht is gemeld dat ITC's de antioxidantcapaciteit van menselijke cellen kunnen verhogen door de expressie van fase II-ontgiftende enzymen te induceren en door de GSH-productie opwaarts te reguleren (Wagner et al 2010). Verder is het bestaan van een overspraak tussen Nrf2 en de nucleaire factor (NF) -κB-route gemeld die resulteert in de modulatie van ontsteking (Sturm en Wagner 2017; Lee en Johnson 2004). In dit opzicht hebben verschillende experimentele in vitro en in vivo modellen van neuro-inflammatie aangetoond dat ITC's de translocatie van NF-KB significant kunnen verminderen met de daaruit voortvloeiende remming van pro-inflammatoire cytokines en MMP's (Lee et al. 2015; Subedi et al. 2017).
In dit artikel hebben we het effect onderzocht van drie ITC's, namelijk allylisothiocyanaat (AITC), 2-fenethylisothiocyanaat (PEITC) en 2-sulforafaan (SFN) op de afgifte van MMP-2 en -9 evenals op ROS-productie door LPS-geactiveerde astrocyten. Onze resultaten toonden aan dat PEITC, SFN en AITC in staat zijn om in vitro de expressie van MMP-9 en MMP-2 in LPS-geactiveerde astrocyten te remmen en de door H2O2 geïnduceerde ROS-productie tegen te gaan. Bovendien hebben we aangetoond dat ITC's de overexpressie van MMP's moduleren met mechanismen die verband houden met remming van de extracellulair-gereguleerde proteïnekinase (ERK) activiteit. Deze resultaten suggereren dat een dieet dat rijk is aan kruisbloemige groenten potentiële voordelen kan hebben voor de preventie en complementaire behandeling van neurologische ziekten.

materialen en methodes
Chemicaliën en reagentia
Dulbecco's gemodificeerd Eagle's medium (DMEM), foetaal runderserum (FBS), penicilline en streptomycine werden geleverd door GIBCO (Paisley, Schotland). Gelatine, DNase 1, poly-L-lysine
(PLL), trypsine, lipopolysacharide (LPS), Trypan Blue en 3-(4,5-dimethylthiazol-2-yl)-2.5-difenyltetrazoliumbromide (MTT ), Allylisothiocyanaat (AITC) [cod. 377.430, zuiverheid 95 procent (HPLC)], 2-Fenethylisothiocyanaat (PEITC) [cod. 253.731, zuiverheid 99 procent )], 2-Sulforafaan (SFN) [cod. S6317, zuiverheid groter dan of gelijk aan 95 procent (HPLC)] werden geleverd door Sigma (St. Louis, MO, VS). 2a,7a-dichloorfluoresceïnediacetaat (DCFH-DA) werd gekocht bij Calbiochem. Standaardeiwitten en R -250 Coomassie Brilliant Blue waren van Bio-Rad (Hercules, CA, VS). Anti-gliaal fibrillair zuur eiwit (GFAP) antilichamen (RRID: AB_2294571) werden gekocht bij Serotec (Oxford, VK). Antilichamen tegen extracellulair gereguleerde proteïnekinasen (ERK) 1/2 en gefosforyleerd ERK 1/2 (p-ERK 1/2) waren afkomstig van Santa Cruz Biotechnology (Santa Cruz, CA). Hybond-P PVDF-membranen, verbeterde chemiluminescentie (ECL) Western Blotting-analysesysteem en secundair anti-muis-HRP-antilichaam waren van GE
Gezondheidszorg Life Sciences (Little Chalfont, Buckinghamshire,
Het VK). Primerparen die specifiek zijn voor MMP-2, MMP-9 en 18S rRNA waren van Sigma Genosys (Cambs, VK). RNeasy-minikit en QuantiTect Reverse Transcription-kit werden gekocht bij Qiagen (Valencia, CA, VS). De Econo-Taq PLUS GREEN 2X Master Mix-reagentia voor PCR werden gekocht bij Lucigen Corporation (Middleton, WI, VS).
Ethische uitspraak
De experimenten met dieren zijn uitgevoerd volgens de aanbevelingen in de NIH Guide for the Care and Use of Laboratory Animals en met goedkeuring van de Institutional Animal Care and Use Committee van de Universiteit van Bari, Italië (vergunningsnummer: 23-98- EEN).
Bereiding van astrocytenculturen
Astrocyten werden bereid uit de neocorticale weefsels van {{0}}eendags oude Wistar-ratten (RRID: RGD_737960, Harlan Laboratories srl, Udine, Italië). Voor de bereiding van astrocyten werden 6 nesten van 12 jongen gebruikt, elk van beide geslachten. De dieren werden geëuthanaseerd door blootstelling aan kooldioxide (CO2) en gedood door snelle onthoofding. De neocorticale weefsels werden ontleed en gebruikt voor de zuivering van primaire gliale celculturen volgens de methode gerapporteerd door Latronico et al. (2018). Kort gezegd, na de dissectie waren de hersenvliezen en bloedvaten van de rattenhersenen ontdaan, mechanisch fijngemaakt en verteerd met 0,25 procent trypsine in aanwezigheid van 0,01 procent DNase. Na centrifugeren en beoordeling van de levensvatbaarheid van de cellen werden de cellen uitgeplaat in PLL-gecoate kolven (75 cm2) met een dichtheid van 1,5 x 10⁷ cellen/fles in DMEM, 10 procent FBS, 100 IE ml -1 penicilline, 100 g ml -1 streptomycine , en gehandhaafd op 37 graden in een 5 procent CO2. Na 7 dagen werden de kolven geschud om oligodendrocyten en microglia te verwijderen. De zuiverheid van astrocyten, verkregen door trypsinisatie (0,25 procent trypsine/0,02 procent EDTA), werd beoordeeld door middel van immunokleuring op GFAP.
Behandeling van door LPS geactiveerde astrocyten met allylisothiocyanaat, fenethylisothiocyanaat of 2-sulforafaan
Confluente astrocyten, gezaaid in platen met 96 putjes, werden gestimuleerd met 10 µg ml -1 LPS en gelijktijdig behandeld met verschillende concentraties allylisothiocyanaat (AITC), 2-fenethylisothiocyanaat (PEITC) of 2-sulforafaan (SFN) in serumvrij DMEM. Astrocyten in serumvrije DMEM- en LPS-geactiveerde astrocyten vertegenwoordigden respectievelijk negatieve en positieve controles. Aangezien de voorraadoplossingen van AITC (100 µM), PEITC (67 µM) en SFN (56,4 µM) werden gemaakt in DMSO, werd bovendien een dosis-responscurve op DMSO verdund in kweekmedium met dezelfde oplosmiddelconcentratie die aanwezig is in de geanalyseerde monsters, werd uitgevoerd om de toxiciteit van de verbinding te schatten. Na 20 uur incubatie bij 37 graden, 5 procent CO2 werden de supernatanten verzameld en bewaard bij -20 graden tot gebruik, terwijl de cellen werden onderworpen aan een MTT-test om de levensvatbaarheid van de cellen te beoordelen.
Levensvatbaarheidstest van MTT-cellen
Cytotoxiciteit van AITC, PEITC en SFN op astrocyten werd gedetecteerd met behulp van de MTT [{{0}}(4,5-dimethylthiazol-2-yl)- 2,{{5 }}difenyltetrazoliumbromide]-test. Deze test is gebaseerd op de reductie van MTT door het mitochondriale succinaatdehydrogenase in levensvatbare cellen tot een onoplosbaar blauw formazanproduct dat spectrofotometrisch kan worden gemeten. In het kort, na behandeling gedurende 20 uur met AITC, PEITC of SFN, werd het kweekmedium verwijderd en werden cellen geladen met 0, 5 mg ml-1 MTT. Na incubatie gedurende 2 uur bij 37°C werd 5% C02-medium verwijderd en werden de formazankristallen in cellen opgelost met 90% ethanol. Na 15 min schudden van de platen om volledige oplosbaarheid van kristallen te verkrijgen, werd de hoeveelheid van het formazanproduct bepaald door optische absorptie bij 560 nm met een referentiegolflengte van 690 nm. De levensvatbaarheid van de cellen werd uitgedrukt als een percentage van de controle (CTRL), weergegeven door onbehandelde cellen, die was ingesteld op 100 procent. Voor elke verbinding werd een dosis-responscurve van de levensvatbaarheid van de cellen verkregen.
Detectie van reactieve zuurstofsoorten
Detectie van reactieve zuurstofspecies (ROS) werd uitgevoerd door astrocyten te laden met 10 μM 2′,7′-dichloorfluoresceïnediacetaat (DCFH-DA) in fenolroodvrij DMEM bij 37 graden gedurende 30 minuten. Vervolgens werd DCFH-DA uit de putjes verwijderd en werden de cellen gedurende 1 uur behandeld met AITC (400 M), PEITC (10 M) of SFN (25 M) in fenolroodvrij DMEM in aanwezigheid van H2O2 bij de eindconcentratie van 100 M . Cellen die alleen met DCFH-DA of met H2O2 werden behandeld, vertegenwoordigden respectievelijk de negatieve (CTRL) en positieve controles (H2O2). Na incubatie werden de cellen gespoeld met PBS en gelyseerd met
Tris–HCl 10 mM/NaCl 150 mM/Triton X-100 0,5 procent, pH 7,5,
vervolgens gecentrifugeerd bij 10,000×g, 4 graden gedurende 10 minuten. Supernatanten werden verzameld en hun spectrofluorimetrische analyse werd uitgevoerd bij 525 nm onder excitatie bij 485 nm. De resultaten werden genormaliseerd naar het totale eiwitgehalte en de ROS-productie werd uitgedrukt als een relatief percentage van de intensiteit van de fotoluminescentie (PL) versus de positieve controle.
Detectie van gelatinasen
Gelatinase-activiteit in celsupernatanten (SN's) werd gedetecteerd door zymografische analyse zoals gerapporteerd door Latronico et al. (2013). In het kort werd een hoeveelheid SN, overeenkomend met ongeveer 10 µg totale eiwitten, opgelost met 30 µl Laemmli-monsterbuffer zonder -mercapto-ethanol. Monsters werden gelopen in een 7,5 procent polyacrylamidegel gecopolymeriseerd met 0,1 procent (wt/v) gelatine. Na de elektroforetische run werden de gels tweemaal gespoeld met 2,5 procent Triton X-100/10 mM CaCl2 in 50 mM Tris-HCl, pH 7,4 en 24 uur geïncubeerd bij 37 graden in 1 procent Triton X-100 /50 mM Tris–HCl/10 mM CaCl2, pH 7,4. De gels werden gekleurd met Coomassie brilliant blue R-250 en ontkleurd in methanol/azijnzuur/H20 (4:1:5 v/v). Gelatinase-activiteit werd zichtbaar gemaakt als een heldere band van digestie op een blauwe achtergrond van de gel en werd gekwantificeerd door gecomputeriseerde densitometrische beeldanalyse met behulp van Image LabTM Software (Bio-Rad Laboratories). gelatinase
activiteit werd uitgedrukt als optische dichtheid (OD) × mm2, wat het scangebied onder de curven weergeeft, waarbij rekening wordt gehouden met zowel de helderheid als de breedte van de lysiszone van het substraat. Gegevens werden uitgedrukt met behulp van de volgende vergelijking: percentage remming=[100 − (OD-monster/OD-positieve controle) × 100].
Omgekeerde transcriptie-polymerasekettingreactie (RT-PCR)
Astrocyten, gezaaid in platen met 6 putjes, werden geactiveerd met LPS (10 µg ml-1) en gelijktijdig behandeld met ITC's bij de maximale niet-toxische concentratie. Na 20 uur incubatie werd totaal RNA uit astrocyten geëxtraheerd met behulp van de Qiagen RNeasy minikit volgens de instructies van de fabrikant. Complementair DNA (cDNA) werd gesynthetiseerd uit 500 ng RNA met behulp van de QuantiTect Reverse Transcription-kit volgens de instructies van de fabrikant. In totaal werd 25 ng reverse transcriptieproducten gebruikt om een fragment van 591 bp te amplificeren met behulp van specifieke primers (sense 5'-GTC ACT CCG CTG CGC TTT TCT CG-3′; antisense 5'-GAC ACA TGG GGC ACC TTC TGA-3′) voor de MMP-2-sequentie van ratten en een fragment van 541 bp met behulp van specifieke primers (sense 5'-CGG AGC ACG GGG ACG GGT ATC 3'; anti-sense 5'-AAG ACG AAG GGG AAG ACG CAC ATC 3') voor de MMP-9-sequentie van ratten. Tegelijkertijd werd amplificatie uitgevoerd van een fragment van 308 bp van 18S-rRNA van ratten (sense 5'-GCCTAGATA CCGCAGCTAGGA-3′; antisense 5'-TCATGGCCTCAG TTCCGAA-3}′), een relatief invariant intern referentiegen . De primersets, al gevalideerd in andere onderzoeken (Latronico et al. 2013; Liuzzi et al. 2004; Gramegna et al. 2011) herkennen specifiek alleen de genen van belang zoals aangegeven door amplificatie van een enkele band van de verwachte grootte van de PCR producten. De PCR-amplificatie werd uitgevoerd gedurende 25 cycli, elk bestaande uit denaturatie bij 94 graden, annealing bij 59 graden en verlenging bij 72 graden. Na amplificatie werden de producten geanalyseerd in 1,5 procent agarosegels. Na de densitometrische analyse van gels werd de amplificatie van de doelwitgenen genormaliseerd naar 18S-rRNA-expressie en werden de resultaten uitgedrukt als een percentage remming in vergelijking met positieve controle zoals gerapporteerd voor gelatinase-kwantificering.
Detectie van ERK 1/2-fosforylering door Western-blot-analyse
ERK 1/2 werd gedetecteerd door middel van immunoblot-analyse zoals gerapporteerd in Latronico et al. (2018). In het kort, samenvloeiend primair
astrocyten uitgeplaat in {{0}}putjesplaten, 24 uur laten rusten in serumvrij medium, werden 1 uur voorbehandeld met AITC (400 M), PEITC (10 μM), of SFN (25 M) in fenolroodvrij DMEM. Na stimulatie gedurende 2 uur met 10 ug mL-1 LPS, werden cellen gelyseerd met 20 mM Tris-HCl, 150 mM NaCl, 2,5 mM Na-pyrofosfaat, 1 mM -glycerofosfaat 1 procent Triton X-100, 1 mM fenylmethylsulfonylfuoride, 20 ug/ml aprotinine, 1 mM EGTA, 1 mM Na-fuoride, 1 mM Na3V04, pH 7,5. Zestig ug totale eiwitten van elk monster werd opgelost door 10% SDS-polyacrylamidegelelektroforese en eiwitten werden vervolgens immunoblot op polyvinylideendifluoridemembranen. Na een nacht blokkering bij 4 graden met 0,05 procent Tween 20, 1 procent melk, 1 procent runderserumalbumine in 150 mM NaCl, 20 mM Tris-HCl (pH 7,5), werden de membranen een nacht bij 4 graden onderzocht met een monoklonaal anti-p- ERK 1/2 antilichaam (1:500). Vervolgens werden de membranen drie keer gewassen met 0,05 procent Tween 20 in Tris-gebufferde zoutoplossing, onderzocht met anti-muis-mierikswortelperoxidase secundair antilichaam (1:20,000) gedurende 2- uur bij 24 graden en gedetecteerd met verbeterde chemiluminescentie. Om de totale hoeveelheid ERK te bepalen, werden membranen gestript en geïncubeerd met een antilichaam dat specifiek is voor niet-gefosforyleerd ERK 1/2 (1:500). De bandintensiteiten werden gekwantificeerd door densitometrische scanning van blots en niveaus van fosforylering van ERK 1/2 werden genormaliseerd naar niet-gefosforyleerd ERK 1/2 en uitgedrukt als een percentage in vergelijking met de positieve controle (astrocyten behandeld met LPS), volgens de volgende vergelijking:
procent pERK 1/2=(ODsample/ODpositieve controle) × 100.
statistische analyse
Gegevensanalyse werd uitgevoerd met behulp van de GraphPad Prism 5.0 (GraphPad Software Inc., San Diego, CA, VS). De gegevens werden uitgedrukt als gemiddelde waarden ± SD. Statistische analyse werd uitgevoerd met behulp van eenrichtingsanalyse van variantie (ANOVA) gevolgd door de post hoc-test van Dunnett's Multiple Comparison.

Resultaten
Effect van isothiocyanaatverbindingen op de levensvatbaarheid van astrocyten
Voorlopige experimenten werden uitgevoerd om de cytotoxiciteit van AITC, PEITC of SFN te evalueren. Hiertoe werden gezuiverde astrocyten gedurende 20 uur behandeld met de ITC-verbindingen in concentraties variërend tussen 5 en 400 µM of met DMSO verdund in kweekmedium zoals beschreven in de methodesectie. Zoals getoond in Fig. 1 was de DMSO niet toxisch bij alle gebruikte concentraties die overeenkomen met die van de geteste ITC-oplossingen. Van de onderzochte ITC's, AITC
Fig. 1 Levensvatbaarheid van de cellen van astrocyten die zijn behandeld met isothiocyanaatverbindingen. Confluente primaire astrocyten werden gedurende 20 uur behandeld met allylisothiocyanaat (AITC), 2-fenethylisothiocyanaat (PEITC) of 2-sulforafaan (SFN) in de aangegeven concentraties en vervolgens onderworpen aan de MTT-test. Bovendien, aangezien het in de voorraadoplossingen was opgelost in dimethylsulfoxide (DMSO), werd in elk experiment een dosis-responscurve voor DMSO, verdund in kweekmedium met dezelfde oplosmiddelconcentratie (procent) als aanwezig in de ITC-monsters uitgevoerd om te verkrijgen een betrouwbare schatting van de ITC-toxiciteit. De controle (CTRL) werd gerepre-
geparfumeerd van onbehandelde astrocyten in serumvrij DMEM. De grafieken vertegenwoordigen de dosis-responscurven van de levensvatbaarheid van de cellen, uitgedrukt als een percentage van celoverleving in vergelijking met controle. De doses verbindingen die de levensvatbaarheid van cellen boven 60 procent bepaalden, werden gekozen als de maximale niet-toxische concentraties. Waarden zijn gemiddelde ± SD van n=3 experimenten uitgevoerd op verschillende celpopulaties. Micrografieken tonen representatieve resultaten van celmorfologie waargenomen onder een fasecontrastmicroscoop (50X vergroting) na behandeling met de verschillende verbindingen
was het minst toxisch voor astrocyten. AITC was met name niet toxisch voor cellen tot 400 µM, terwijl PEITC en SFN toxisch waren bij concentraties boven respectievelijk 10 en 25 µM. De microscopische waarneming bevestigde de resultaten van de MTT-test die aantoonde dat bij de toxische concentraties van PEITC en SFN, astrocyten in aantal waren verminderd en dat degenen die overbleven cytotoxische veranderingen in hun cytoplasma vertoonden.
Beschermend effect van ITC-verbindingen op ROS-productie in met waterstofperoxide behandelde astrocyten
Om het beschermende effect van ITC's tegen oxidatieve stress te evalueren, werden astrocyten voorbehandeld met PEITC, AITC en SFN bij de maximale niet-toxische concentratie en vervolgens gestimuleerd met H2O2. De intracellulaire ROS-productie, geïnduceerd door H2O2, werd bepaald door DCFH-DA. Zoals getoond in Fig. 2, versterkte de blootstelling aan H2O2 het fluorescente signaal in

Fig. 2 Productie van reactieve zuurstofspecies (ROS) in astrocyten die zijn behandeld met ITC's. De aanwezigheid van ROS werd getest door de veranderingen van het fluorescentiesignaal van 2′,7′-dichloorfluoresceïne (DCFA) te meten, zoals gerapporteerd in de sectie Materialen en methoden. Astrocyten, gezaaid in platen met 6 putjes, werden 30 minuten voorbehandeld met DCFA en vervolgens 1 uur behandeld met 10 M PEITC, 400 M AITC of 25 μM SFN in aanwezigheid van H2O2 bij een eindconcentratie van 100 μM . Astrocyten behandeld met alleen DCFA (CTRL) of met 100 μM H2O2 vertegenwoordigden respectievelijk negatieve en positieve controle. Het in cellysaten gedetecteerde fluorescentiesignaal werd gemeten met een fluorometer bij 525 nm onder excitatie bij 485 nm. De ROS-productie werd uitgedrukt als een percentage (procent) van fotoluminescentie (PL) intensiteit in vergelijking met positieve controle. Waarden zijn gemiddelde ± SD van n=3 experimenten uitgevoerd op verschillende celpopulaties. Statistisch significante afname in vergelijking met H2O2 wordt aangegeven door asterisken (one-way ANOVA gevolgd door Dunnet's post hoc test; *p <>
astrocyten in vergelijking met controle (CTRL). Zoals blijkt uit de afname van de DCF-fluorescentie-intensiteit, ging de voorbehandeling van astrocyten met ITC-verbindingen de door H2O2 geïnduceerde ROS-generatie tegen. Van de geteste ITC's waren alleen PEITC en SFN in staat om de ROS-productie significant te verminderen met respectievelijk ongeveer 20 en 24 procent in vergelijking met een positieve controle (H2O2).
De isothiocyanaatverbindingen remmen MMP-2- en MMP-9-niveaus in LPS-geactiveerde astrocyten
Het effect van ITC-verbindingen op MMP-2- en MMP-9-niveaus werd geëvalueerd op astrocyten geactiveerd met LPS, waarvan bekend is dat het de expressie van gelatinasen induceert (Gottschall en Deb 1996), en gelijktijdig behandeld met AITC, PEITC of SFN in het concentratiebereik dat niet toxisch was voor cellen. Zoals getoond in Fig. 3a waren twee duidelijke banden van digestie van 72 en 92 kDa aanwezig op de gel die respectievelijk overeenkomen met MMP-2 en MMP-9. De activering van astrocyten met LPS verhoogde de niveaus van MMP-2 en induceerde de synthese van MMP-9. Behandeling met AITC (Fig. 3b), PEITC (Fig. 3c) of SFN (Fig. 3d) bepaalde een dosisafhankelijke
verlaging van MMP-9-niveaus, die varieerde afhankelijk van de gebruikte verbinding. Met name van de gebruikte ITC was SFN het meest effectief bij het remmen van MMP-9, aangezien het 70 procent remming bepaalde bij een dosis van 10 M en 100 procent remming bij een dosis van 25 M. Bovendien was alleen SFN bij de maximale niet-toxische concentratie in staat om MMP -2 significant te remmen (Fig. 2d).
De isothiocyanaatverbindingen remmen MMP-2- en MMP-9-genexpressie in LPS-geactiveerde astrocyten
Om te bepalen of de onderzochte ITC-verbindingen de expressie van MMP-2 en MMP-9 konden remmen, werd RT-PCR uitgevoerd op LPS-geactiveerde astrocyten die waren behandeld met de maximale niet-toxische concentratie van ITC's. Zoals getoond in de representatieve gels in Fig. 4a was de behandeling van LPS-geactiveerde astrocyten met de individuele ITC's in staat om de verhoogde expressie van MMP-2 en MMP-9 mRNA tegen te gaan. Zoals getoond in Fig. 4b, bewees de kwantitatieve analyse van resultaten dat, bij de maximale niet-toxische concentratie, de ITC-verbindingen een statistisch significante remming van MMP-2 en MMP-9-expressie bepaalden in vergelijking naar een positieve controle (LPS). In het bijzonder oefenen PEITC en SFN hetzelfde remmingspercentage uit op MMP-2 (85 procent) en MMP-9 (100 procent), terwijl AITC minder effectief was dan PEITC en SFN bij het remmen van MMP{{17} } (65 procent ) en MMP-9 (90 procent ) expressie.
ERK 1/2 is betrokken bij de remming van MMP-expressie door ITC
Aangezien ERK 1/2 de belangrijkste signaaltransductieroute is die betrokken is bij de regulatie van MMP-2- en MMP-9-expressie in LPS-geactiveerde astrocyten (Lee et al. 2003), is het effect van ITC-verbindingen op de activering van extracellulair gereguleerde proteïnekinasen (ERK) 1/2 werd getest.
Zoals getoond in Fig. 5 induceerde LPS een statistisch significante toename in niveaus van gefosforyleerd ERK 1/2 (p-ERK) die werd tegengegaan door voorbehandeling met de ITC-verbindingen.
Discussie
Er wordt algemeen aangenomen dat de belangrijkste verdedigingsstrategieën tegen veel ziekten voornamelijk bestaan uit het vermijden van risicofactoren en het aannemen van een correcte levensstijl. Er zijn tal van wetenschappelijke bewijzen die de hypothese ondersteunen dat sommige natuurlijke metabolieten, die doorgaans door verschillende soorten groenten en fruit worden geproduceerd, pathologische fenomenen zoals kanker, neurologische ziekten en andere multifactoriële ziekten kunnen moduleren. In dit scenario wekten de isothiocyanaten (ITC's) grote belangstelling gezien hun antischimmel-, antibacteriële,

Fig. 3 Effect van isothiocyanaatverbindingen op MMP-2- en MMP-9-niveaus in LPS-geactiveerde astrocyten. In a wordt een representatieve zymografische gel gerapporteerd van de analyse van kweeksupernatanten van astrocyten geactiveerd met LPS (10 ug mL -1) en gelijktijdig gedurende 20 uur behandeld met AITC, PEITC of SFN bij de aangegeven concentraties (μM). Negatieve en positieve controles werden verkregen van niet-gestimuleerde en onbehandelde astrocyten in serumvrij medium (CTRL) en LPS-
geactiveerde cellen (LPS), respectievelijk. Histogrammen b-d vertegenwoordigen resultaten (gemiddelde ± SD) van n {{0}} experimenten uitgevoerd op verschillende celpopulaties, uitgedrukt als een percentage van MMP-remming in vergelijking met LPS, berekend na scanning densitometrie en gecomputeriseerde analyse van gels . Statistisch significante afname in vergelijking met LPS wordt aangegeven door asterisken (one-way ANOVA gevolgd door Dunnet's post hoc test; *p < 0.05,="" **p=""><>
anticarcinogene, antimutagene, antioxiderende en ontstekingsremmende biologische eigenschappen (Dufour et al. 2015; Marzocco et al. 2015; Vig et al., 2009; Talalay en Fahey 2001). Isothiocyanaten zijn afkomstig van de enzymatische afbraak van glucosinolaten (GSL), secundaire metabolieten die aanwezig zijn in 15 botanische families van de Capparales-orde en die zeer overvloedig voorkomen in de familie Brassicaceae (Fahey et al. 2001). GSL wordt gehydrolyseerd door myrosinase (-thioglucoside glucohydrolase e; EC 3.2.3.147) in een verscheidenheid aan componenten zoals ITC's, nitrieten, thiocyanaten, epithionitrillen, SFGate, glucose en oxazolidines (Li en Kushad 2005). Hoewel ITC's uitgebreid zijn bestudeerd op chemotherapeutisch gebied (Grundemann en Huber 2018), is er weinig onderzoek gedaan naar hun therapeutisch potentieel bij neurologische aandoeningen, ondanks het feit dat het vermogen van SFN en AITC is aangetoond om de BBB te passeren en zich ophopen in het hersenparenchym. (Clarke et al. 2011; Jazwa et al. 2011; Zhang 2010). In dit artikel vergeleken we de effecten van drie ITC's,
aanwezig in verschillende veelgebruikte kruisbloemige groenten, op productie van reactieve zuurstofsoorten (ROS) en expressie van matrixmetalloproteïnase (MMP) in een in vitro model van neuro-inflammatie, weergegeven door astrocyten geactiveerd met lipopolysaccharide (LPS) of behandeld met H2O2. Astrocyten, het meest voorkomende gliaceltype van het CZS, spelen een cruciale rol bij het in stand houden van de homeostase van de hersenen en zijn kenmerkend voor verschillende neurologische ziekten (Cekanaviciute en Buckwalter 2016; Colombo en Farina 2016). Ze worden beschouwd als cruciale regulatoren van de aangeboren immuunrespons en hun reactie op schadelijke beledigingen, zoals oxidatieve stress, kan ontstekingsreacties en weefselbeschadiging verergeren of weefselherstel bevorderen. Het is algemeen bekend dat geactiveerde astrocyten neurotoxische factoren produceren zoals MMP's die een sleutelrol spelen bij het bevorderen van neuro-inflammatie en progressief neuronaal verlies bij neurologische ziekten (Hsieh en Yang 2013). Daarom is de modulatie van de
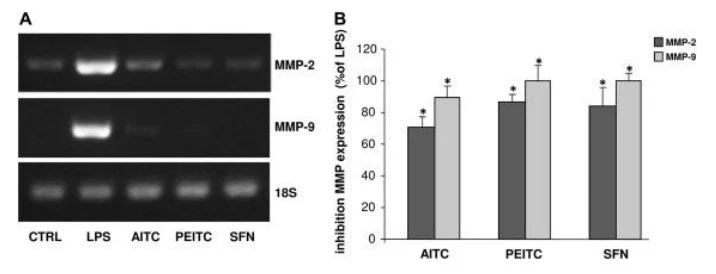
Fig. 4 Effect van ITC-verbindingen op MMP-2- en MMP-9-expressie in LPS-geactiveerde astrocyten. Astrocyten, gezaaid in platen met 6 putjes, werden geactiveerd met LPS (10 g ml-1) en gelijktijdig 20 uur behandeld met AITC (400 M), PEITC (10 M) of SFN (25 M), vervolgens onderworpen aan RT-PCR. Representatieve agarosegels van MMP-2- en MMP-9-expressie worden vermeld in (a). Histogrammen in (b) vertegenwoordigen resultaten (gemiddelde ± SD) van n=3 experimenten uitgevoerd op verschillende cel
gebeurtenissen die optreden na activering van astrocyten kunnen de ontstekingsreactie en neuronale schade verminderen.
De resultaten van dit onderzoek gaven aan dat van de onderzochte ITC's AITC minder toxisch was, aangezien het bij alle gebruikte concentraties niet leidde tot een vermindering van de levensvatbaarheid van de cellen. Daarentegen vertoonden PEITC en SFN, net als andere auteurs op verschillende gliacellijnen, cellulaire toxiciteit bij concentraties hoger dan respectievelijk 10 en 25 µM (Lee et al. 2015; Eren et al. 2018; Su et al. 2015).
In de huidige wetenschappelijke literatuur zijn er veel controversiële gegevens over de moleculaire mechanismen die ten grondslag liggen aan de effecten van ITC's op de levensvatbaarheid van cellen. In dit opzicht hebben de meeste onderzoeken gesuggereerd dat ITC's de cellulaire groei-inducerende apoptose, het stoppen van de celcyclus, het genereren van ROS in kankercellen maar niet in normale cellen remmen (Fofaria et al. 2015; Qin et al. al. 2018; Sestili en Fimognari 2015). We ontdekten dat SFN en PEITC, maar niet AITC, een beschermende rol spelen tegen oxidatieve stress in astrocyten, inderdaad bij de maximale niet-toxische concentraties waren ze in staat om de ROS-productie tegen te gaan die werd veroorzaakt door blootstelling aan H2O2. Het CZS is bijzonder kwetsbaar voor oxidatieve stress vanwege het hoge zuurstofverbruik, de zwakke antioxidantsystemen en het hoge gehalte aan biomacromoleculen die gevoelig zijn voor oxidatie. Aangenomen wordt dat het ontstaan van ROS en oxidatieve schade betrokken is bij de pathogenese van neurologische aandoeningen zoals de ziekte van Alzheimer (AD), de ziekte van Parkinson (PD), amyotrofische laterale sclerose (ALS) en multiple sclerose (MS) (Lee et al. 2015). Daarom, hoewel SFN en PEITC in onze in vitro experimenten de ROS-productie in gematigde mate tegengingen, zouden we kunnen veronderstellen dat in vivo een langdurige toediening van ITC's kan leiden tot een significantere vermindering van ROS die, na verloop van tijd, kan resulteren in zinvolle voor populaties uitgedrukt als een percentage van MMP-remming in vergelijking met de positieve controle (LPS), berekend na scanning densitometrie en gecomputeriseerde analyse van gels. Een statistisch significante afname van MMP-2- en MMP-9-expressie in vergelijking met LPS wordt aangegeven met asterisken (one-way ANOVA gevolgd door Dunnet's post hoc-test; *p <>
de preventie en modulatie van hersenziekten. ROS fungeert als een kritisch signaalmolecuul om de cascade van ontstekingsreacties in het CZS te activeren. In dit opzicht is het algemeen bekend dat ROS de expressie reguleert van veel genen die betrokken zijn bij neuro-inflammatie door de activering van pro-inflammatoire transcriptiefactoren zoals nucleaire factor-KB (NF-KB) (Lee et al. 2015; Chiurchiù et al. 2016; Martorana et al. 2019). In dit scenario wordt een belangrijke rol gespeeld door MMP's waarvan de expressie wordt opgereguleerd door ROS door de activering van NF-KB (Yan en Boyd 2007).
Aangezien MMP-ontregeling bijdraagt aan de pathogenese van talrijke neuro-inflammatoire en neurodegeneratieve ziekten, vormt hun remming een belangrijke therapeutische strategie. Om deze reden is de afgelopen tien jaar een groeiende belangstelling ontstaan voor het potentieel van geneesmiddelen en natuurlijke verbindingen om MMP's te remmen. Talrijke in vitro-onderzoeken hebben aangetoond dat de ontstekingsremmende en antioxiderende werking van verschillende geneesmiddelen en bioactieve stoffen die aanwezig zijn in groenten en mariene organismen, verband houden met hun vermogen om de expressie van MMP's te remmen (Latronico et al. 2016, 2018; Di Bari et al. 2015). In deze studie hebben we aangetoond dat van de geteste ITC's SFN en PEITC het meest effectief waren in het remmen van MMP-2- en MMP-9-niveaus en expressie in LPS-geactiveerde astrocyten. De remming van MMP's door ITC's is gemeld in andere in vivo en in vitro onderzoeken. In het bijzonder, Li et al. (2013) toonden aan dat SFN in staat is om de BBB-schade te verminderen door MMP-9-expressie te remmen in een in vivo model van experimentele auto-immuun encefalomyelitis. Andere auteurs meldden dat SFN de expressie van MMP-9 kon verzwakken na een dwarslaesie bij muizen (Mao et al. 2010a). Bovendien hebben in vitro-onderzoeken aangetoond dat de onderdrukking door ITC's van celmigratie en
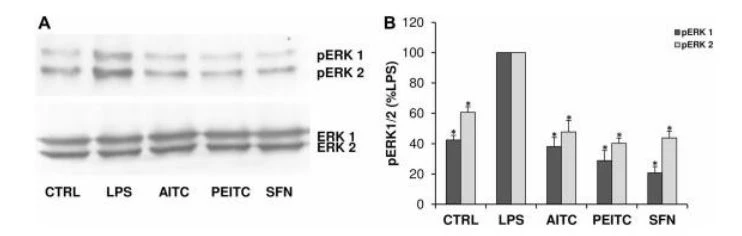
Fig. 5 Extracellulair signaal-gereguleerd kinase 1/2 (ERK 1/2) is betrokken bij de remming van MMP-expressie door ITC-verbindingen. Representatieve autoradiografische films van western blotting-analyse van lysaten van astrocyten voorbehandeld gedurende 1 uur met AITC (400 M), PEITC (10 M) of SFN (25 M), en vervolgens gedurende 2 uur geactiveerd met LPS (10 ug ml{{ 13}}). Onbehandelde en niet-gestimuleerde cellen vertegenwoordigen negatieve controle (CTRL). Het histogram in (b) vertegenwoordigt pERK1/2-niveaus-invasie in C6-glioomcellen was geassocieerd met remming van MMP -9-expressie gemedieerd door NF-KB (Lee et al. 2015).
De moleculaire mechanismen waarmee ITC's MMP's remmen, zijn onduidelijk en er zijn geen studies die de antioxiderende en ontstekingsremmende eigenschappen van ITC's op primaire astrocytculturen onderzoeken. Verschillende onderzoeken ondersteunen de hypothese dat het remmende effect van ITC's een gevolg is van hun vermogen om NF-KB te blokkeren via de Nrf2-signaleringsroute. In dit opzicht bewijst een in vivo onderzoek dat Nrf2-knock-outmuizen vatbaarder waren voor NF-KB-gemedieerde ontstekingsreactie van het ruggenmerg en voor de verhoogde expressie van NFKB-afhankelijke genen, waaronder MMP-9 (Mao et al. 2010b ). Hoewel NF-KB- en Nrf2-routes met elkaar zouden kunnen samenwerken, hebben we aangetoond dat de regulatie van NF-KB ook plaatsvindt door de modulatie van moleculaire mechanismen die onafhankelijk zijn door Nrf2. We ontdekten inderdaad dat AITC, PEITC en SFN de activering van ERK1/2 remden, wat een cruciale rol speelt in de cascade van signaaltransductiegebeurtenissen die uiteindelijk MMP-gentranscriptie reguleren.
Het experimentele bewijs dat SFN bij de maximale niet-toxische concentratie zowel MMP-9-expressie als -niveaus volledig remde, terwijl AITC en PEITC de MMP-9-expressie remden tot een maximum, maar MMP alleen lieten afnemen{{3} } niveaus tot ongeveer 50 procent, zou erop kunnen wijzen dat deze verbindingen de MMP-9-transcriptie moduleren met verschillende werkingsmechanismen. In dit opzicht is gemeld dat SFN, naast de remming van door LPS geïnduceerde activering van NF-KB, de binding van LPS aan de TLR4-receptor verstoort (Koo et al 2013). Het remmende effect van SFN op TLR4 zou de activering van astrocyten door LPS kunnen voorkomen en dit kan resulteren in de stroomopwaartse remming van MMP-9-expressie met als gevolg een gebrek aan MMP-9-productie.
verkregen na densitometrische scanning van autoradiografische films en normalisatie naar niet-gefosforyleerd ERK 1/2. Gegevens vertegenwoordigen gemiddelden ± SD van n=3 experimenten uitgevoerd op verschillende celpopulaties. Sterretjes vertegenwoordigen waarden die statistisch verschillen van positieve controle (LPS-geactiveerde astrocyten), die was ingesteld op 100 procent (one-way ANOVA gevolgd door de Dunnett's Multiple Comparison post hoc test; *p <>

conclusies
Samenvattend geven onze gegevens aan dat behandeling van astrocyten met ITC's de vorming van ROS vermindert en de afgifte van MMP-2 en MMP-9 remt, wat nieuwe inzichten oplevert in de antioxiderende en ontstekingsremmende eigenschappen van ITC's op gliacellen. cellen. Deze resultaten suggereren dat ITC's veelbelovende nutraceutische middelen kunnen zijn voor de ontwikkeling van neuro-voedingsinterventies, gebaseerd op het gebruik van gezond voedsel, voor de preventie en complementaire behandeling van neurologische ziekten.
Financiering Open access-financiering verstrekt door Università Degli Studi di Bari Aldo Moro binnen de CRUI-CARE-overeenkomst.
Naleving van ethische normen
Belangenverstrengeling De auteurs verklaren geen belangenverstrengeling.
Open toegang Dit artikel is gelicentieerd onder een Creative Commons Attribution 4.0 International License, die het gebruik, delen, aanpassen, distribueren en reproduceren in elk medium of formaat toestaat, zolang je de oorspronkelijke auteur de juiste naam geeft (s) en de bron, een link naar de Creative Commons-licentie verstrekken en aangeven of er wijzigingen zijn aangebracht. De afbeeldingen of ander materiaal van derden in dit artikel zijn opgenomen in de Creative Commons-licentie van het artikel, tenzij anders aangegeven in een kredietlijn bij het materiaal. Als materiaal niet is opgenomen in de Creative Commons-licentie van het artikel en uw beoogde gebruik niet is toegestaan door wettelijke voorschriften of het toegestane gebruik overschrijdt, dient u rechtstreeks toestemming te verkrijgen van de auteursrechthebbende. Ga naar http://creativecommons.org/licenses/by/4.0/ om een kopie van deze licentie te bekijken.