Deel 1: Waarom hebben cytokinine-plantenhormonen neuroprotectieve activiteit in in vitro-modellen van de ziekte van Parkinson?
Mar 22, 2022
Contact:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Pls klik hier om deel 2
Cistanche heeft een zeer goed neuroprotectief effect
Gabriel Gonzalez 1,2, Jiˇrí Grz 1, Cosimo Walter D'Acunto 1, Petr Ka ˇnovsk2 en Miroslav Strnad1,2,*
1. Laboratorium voor groeiregulatoren, Instituut voor Experimentele Plantkunde van de Tsjechische Academie van Wetenschappen,
en Faculteit Wetenschappen, Palacký University, Šlechtitel ˚u 27, CZ-78371 Olomouc, Tsjechië;
Gonzalez.gabriel@seznam.cz (GG); jiri.gruz@upol.cz (JG); waldacun@gmail.com (CWD)
2. Afdeling Neurologie, Universitair Ziekenhuis Olomouc en Faculteit Geneeskunde en Tandheelkunde,
Palacký University Olomouc, CZ-775 20 Olomouc, Tsjechië; Petr.Kanovsky@fnol.cz
* Correspondentie: miroslav.strnad@upol.cz; Tel.: plus 420-585-634-850
Abstract: Cytokinineszijn op adenine gebaseerde fytohormonen die belangrijke processen in planten reguleren, zoals celdeling en differentiatie, wortel- en scheutgroei, apicale dominantie, vertakking en zaadkieming. In voorlopige studies hebben ze ook beschermende activiteiten aangetoond tegen menselijke neurodegeneratieve ziekten. Om de kennis van de bescherming (beschermende activiteit) die ze bieden uit te breiden, hebben we activiteiten van natuurlijkecytokininestegen door salsolinol (SAL) geïnduceerde toxiciteit (aziekte van Parkinsonmodel) en glutamaat (Glu)-geïnduceerde dood vanneuron-achtige dopaminerge SH-SY5Y-cellen. We ontdekten dat kinetine-3-glucoside, cis-zeatine-riboside en N6-isopentenyl-adenosine actief waren in het SAL-geïnduceerde PD-model. Bovendien verminderden trans-, cis-zeatine en kinetine samen met de ijzerchelator deferoxamine (DFO) en de necroptose-remmer necrostatine 1 (NEC-1) de celsterfte aanzienlijk in het door Glu geïnduceerde model. Lactaatdehydrogenase-assays onthulden dat decytokinineslager verstrektneuroprotectiefactiviteit dan DFO en NEC-1. Bovendien verminderden ze apoptotische caspase-3/7-activiteiten minder sterk dan DFO. echter, decytokinineshad zeer vergelijkbare effecten als DFO en NEC-1 op de productie van superoxideradicalen. Over het algemeen vertoonden ze beschermende activiteit in het SAL-geïnduceerde model vanparkinsonneuronaalceldood en het Glu-geïnduceerde model van oxidatieve schade, voornamelijk door vermindering van oxidatieve stress.
Sleutelwoorden: cytokinine; fytohormoon; neurobescherming; neuronachtige SH-SY5Y-cellen; cytotoxiciteit; salsolinol; glutamaat; oxidatieve stress; ziekte van Parkinson

cistanche plantover de effecten opNeuroprotectie
1. Inleiding
ziekte van Parkinson(PD) is de op één na meest voorkomende motorgerelateerde neurodegeneratieve ziekte en het aantal wereldwijd gediagnosticeerde gevallen zal naar verwachting stijgen van 6 miljoen in 2015 tot meer dan 12 miljoen in 2040 [1]. Het wordt gekenmerkt door motorische symptomen die verband houden met specifieke degeneratie en verlies van ongeveer 30-70 procent van de dopaminerge (DA)neuronenin de substantia nigra pars compacta en hun projecties naar het striatum [2,3]. Enkele van de vele bekende moleculaire kenmerken van PD zijn onder meer verhoogde oxidatieve en nitrosatieve stress, mitochondriale disfunctie [4-7], excitotoxiciteit [8], ubiquitine/proteasomale systeemdisfunctie [9] en neuro-ontsteking [10]. De huidige behandelingen hebben verschillende nadelige bijwerkingen en bieden alleen symptomatische verlichting [11], dus er worden intensieve inspanningen geleverd om medicijnen te ontwikkelen met efficiënte genezende effecten op degenererende DAneuronen. Hulpbronnen die dergelijke inspanningen kunnen ondersteunen, zijn onder meer natuurlijke verbindingen die doorgaans minder bijwerkingen hebben. Onder andere stoffen van Ginkgo biloba (ginkgetin, ginkgolide, bilobalide), ginseng (ginsenosiden) en flavonoïden (baicaleïne, kaempferol, rutine en luteoline) hebben in verschillende in vitro modellen (waaronder de humane neuroblastoomcellijn SH -SY5Y) en in vivo modellen van PD geïnduceerd door 1,1'-dimethyl-4,4'-bipyridiniumdichloride (paraquat), 1-methyl- 4-fenyl-1, 2,3,6-tetrahydropyridine (MPTP), 1-methyl-4-fenylpyridinium (MPP plus), en 6-hydroxydopamine (6-OHDA) [12].
De hier gepresenteerde studie richtte zich op de effecten van een klasse van natuurlijke fytohormonen genaamdcytokinines(CK's), en hun metabolieten, die bekende regulatoren zijn van celdeling, groei, differentiatie en bladveroudering in planten [13]. Structureel zijn CK's adeninederivaten die op de N6-positie zijn gesubstitueerd met ofwel een prenyl (isopentenyl) of aromatische zijketen. Natuurlijke vormen omvatten 6-(E)-4-hydroxy-3-methyl maar-2-enylaminopurine (trans-zeatine, tZ), zijn 6-(Z)-isomeer ( cis-zeatine, cZ), N6-isopentenyl-adenine (iP), 6-benzylaminopurine (BAP), 6-furfurylaminopurine (kinetine, K), en ortho-, meta-, en para-gehydroxyleerde of gemethoxyleerde derivaten van BAP, topolinen genaamd (oT, mT, pT, MeoT, MemT, MepT). Verschillende 9-ribosides, 9-nucleotiden, evenals 7-, 9 en O-glucosiden van deze vormen komen ook vaak voor, zoals weergegeven in Tabel 1. Naast hun natuurlijke rol in planten, hebben CK's een krachtige antioxiderende activiteit getoond tegen reactieve zuurstofspecies (ROS) die bescherming bieden in verschillende in vitro stressmodellen van verouderingsgerelateerde aandoeningen [14].
Tabel 1. Structuren vancytokininesen de positieve controlemiddelen.


In het bijzonder hebben CK's naar verluidt cytoprotectieve activiteit in modellen zoals H2O2--geïnduceerde celdood van menselijke fibroblasten [15] en D-galactose-geïnduceerde glycoxidatieve stress in astrocyten van ratten [16]. Wat nog belangrijker is, in deze context hebben ze aangetoond:neuroprotectiefeffecten in modellen gerelateerd aan neurodegeneratieve ziekten zoals familiaire PD, proteasoomremmer MG 132-geïnduceerde of H2O2-geïnduceerde toxiciteit in SH-SY5Y-cellen [17], Glu-geïnduceerde oxidatieve schade van HT22 muis hippocampusneuronaalcellen [18], en het PC12-celmodel van de ziekte van Huntington [19]. Andere studies geven aan dat de beschermende activiteiten van CK's zowel directe [20,21] als indirecte [15,16,22] modulatie van cellulaire redoxsystemen omvatten. Naast de karakteristieke antioxiderende activiteiten van CK's, hebben ze naar verluidt regulerende effecten in mitochondriën die deneuronaallevensvatbaarheid [17]. Bovendien kan K het mitochondriale membraanpotentieel stabiliseren en de ATP-productie verhogen, waardoor Glu-geïnduceerde dood van HT22-cellen wordt verminderd [18]. Ondanks bevindingen met betrekking tot hun effecten in verschillende modellen, is er echter beperkte kennis van de beschermende activiteit van CK's bij de meest voorkomende (sporadische) vorm van PD.
Om de hierboven beschreven kenniskloof aan te pakken, hebben we de effecten van natuurlijke CK's en hun metabolieten systematisch geëvalueerd in twee in vitro modellen: een door salsolinol (SAL) geïnduceerd model van PD en glutamaat (Glu) geïnduceerd model van oxidatieve schade inneuron-achtige SH-SY5Y-cellen. Deze lijn werd gebruikt vanwege het dopaminerge fenotype, de gevoeligheid voor dopaminerge toxines zoals SAL en de gemakkelijke vorming van relatief stabiele populaties van gedifferentieerdeneuronaalcellen met verminderde proliferatiesnelheden na 48 uur blootstelling aan 10 uM all-trans-retinoïnezuur (ATRA) [23-25].
neuron-achtige cellen werden blootgesteld aan het endo/exotoxine SAL om PD-pathologie na te bootsen via disfunctie van het cellulaire redoxsysteem: uitputting van het glutathion (GSH), en remming van zowel anti-oxidant enzym (Cu/Zn superoxide dismutase en catalase) activiteiten en mitochondriale complexen (I en II), wat leidt tot apoptose en necrose [26]. In het andere model induceert Glu potentieel dodelijke oxidatieve schade door verstoring van het redoxsysteem. Beide modellen in de SH-SY5Y-cellijn zijn eerder gebruikt in neuroprotectieonderzoeken [26,27].
Cytoprotectieve en/of antioxiderende activiteiten die verband houden met degeneratieve aandoeningen van K, iP, BAP, iPR, tZR en hun vrije basen zijn getest en (zoals hierboven uiteengezet) bleken sommige CK's beschermende activiteiten te hebben inneuronaalcellen. Er zijn echter geen eerder gepubliceerde studies die de structuur-neuroprotectiefactiviteitsrelatie (SAR) van natuurlijke CK's (tabel 1). Daarom is dit onderzoek uitgevoerd om te onderzoeken ofneuroprotectief(anti-parkinson) activiteiten van bijna alle bekende natuurlijk voorkomende CK's in de geselecteerde SAL- en Glu-geïnduceerde modellen van neurodegeneratie. Eerst evalueerden we de zuurstofradicaalabsorptiecapaciteit (ORAC) en (in veiligheidstests) cytotoxiciteit van elk van de CK's voorneuron-achtige SH-SY5Y-cellen. Vervolgens evalueerden we de neuroprotectieve effecten en invloed van de verbindingen op oxidatieve stressniveaus door de productie van superoxide (O2 .) (dihydroethidium, DHE-assay) en apoptotische caspase-3,7-activiteiten te meten. De resultaten geven de eerste gerapporteerde systematische indicaties van de relaties tussen natuurlijke CKs-structuren enneuroprotectiefactiviteiten.

Cistanche kruidenheeft een zeer goedeneuroprotectiefeffect
2. Resultaten en discussie
2.1. De zuurstofradicale absorptiecapaciteit van cytokininen (ORAC)
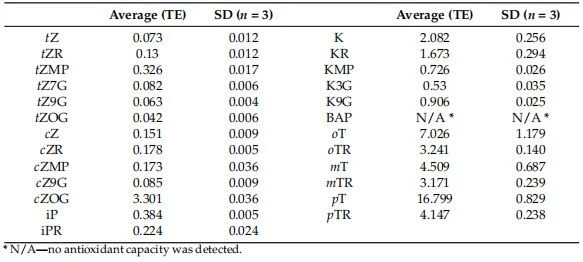
Aangezien neurodegeneratieve ziekten geassocieerd zijn met verhoogde oxidatieve stress, speelt antioxidantactiviteit een sleutelrol in de afweer vanneuronaalcellen. Om het biologische potentieel van CK's in dit opzicht te beoordelen, werd de antioxidantcapaciteit bepaald door ORAC, die vaak wordt gebruikt om de antioxidantcapaciteit van stoffen te bepalen [28]. De antioxidantcapaciteit werd uitgedrukt als Trolox-equivalenten (TE), wat de effectiviteit (lager tot hoger) van verbindingen dan Trolox op equimolaire basis bepaalt. De resultaten, weergegeven in tabel 1, laten zien dat topolinen (oT, mT en pT) en hun ribosiden (oTR, mTR, pTR) hoge antioxiderende activiteiten hebben, die waarschijnlijk nauw verwant zijn aan het elektronenrijke systeem van hun C{{ 3}}hydroxybenzylaminosubstituent. Ondanks hun hoge ORAC-waarden hadden de topolinen geen hogeneuroprotectiefwerkzaamheid. Verschillende heteroaromatische CK's, waaronder K (N6-furfurylaminopurine) en niet-aromatische cis-zeatine-O-glucoside (cZOG), die een 4-hydroxy-3-methylbut{{7} heeft }en-1-yl)aminosubstituent, vertoonde ook een hoge antioxidantcapaciteit (Tabel 2). Andere CK-metabolieten, waaronder kinetine-3-glucoside (K3G), kinetineriboside 5<-monophosphate (kmp),="" kinetin-9-glucoside="" (k9g),="" and="" trans-zeatin=""><- monophosphate="" (tzmp)—had="" moderate="" antioxidant="" activity.="" all="" the="" others="" had="" detectable="" capacity="" except="" bap.="" these="" results="" confirm="" previous="" findings="" that="" ip,="" pt,="" k="" can="" act="" as="" direct="" radical="" scavengers,="" but="" conflict="" with="" the="" previously="" reported="" activity="" of="" bap="" in="" the="" orac="" test="" [20,21].="" to="" conclude,="" these="" compounds="" have="" potential="" in="" the="" treatment="" of="" neurodegenerative="" diseases="" associated="" with="" increased="" oxidative="" stress="">

voordelen cistanche stengelAananti-alzheimer ziekte
2.2. Differentiatie van SH-SY5Y-cellen
CK's bestuderenneuroprotectiefeffecten werden SH-SY5Y-neuroblastoomcellen (gekozen om reeds beschreven redenen [23]) gedifferentieerd door blootstelling aan 10 uM ATRA gedurende 48 uur zoals eerder beschreven [23,24]. Ze werden vervolgens gekleurd met behulp van een membraankleuringskit om morfologische verschillen tussen ongedifferentieerde en gedifferentieerde cellen te onderzoeken. Zoals weergegeven in figuur 1A, is deneuron-achtige gedifferentieerde cellen groeiden minder dicht, waren langer en produceerden meer neurieten (aangegeven door gele pijlen in de figuur) dan de ongedifferentieerde cellen. Deze morfologische veranderingen geassocieerd met differentiatie zijn eerder waargenomen, zelfs na kortere blootstelling (24 uur) aan ATRA [24,30]. Wat nog belangrijker is, het aantal neurieten stijgt dramatisch tot een niveau waarop ze een neurietennetwerk kunnen creëren. Om deze reden werd de levensvatbaarheid van de cellen gemeten om de proliferatiesnelheid van ongedifferentieerde en gedifferentieerde SH-SY5Y-cellen te vergelijken. De levensvatbaarheid van ongedifferentieerd SH-SY5Y werd genomen als de maximale proliferatiesnelheid. De resultaten zijn aanwezig in
Figuur 1B laat zien dat de proliferatiesnelheid (beoordeeld door Calcein AM-levensvatbaarheidstest) van SH-SY5Y met 23 procent was verminderd na 48 uur ATRA-behandeling.

Figuur 1. (A) Fluorescerende microfoto's van SH-SY5Y-cellen met membranen gekleurd met behulp van een Neurite-uitgroeikit (Invitrogen™): controle, ongedifferentieerde cellen (blootgesteld aan schijnbehandelingsoplossing:<0.1% dmso);="" cells="" differentiated="" by="" exposure="" to="" 10="" um="" all-trans="" retinoic="" acid="" (atra)="" for="" 48="" h.="" bars="50" um.="" (b)="" proliferation="" rates="" of="" undifferentiated="" and="" differentiated="" sh-sy5y="" cells:="" numbers="" of="" viable="" cells="" after="" 48="" h="" exposure="" to=""><0.1% dmso="" and="" 10="" um="" atra,="" respectively.="" data="" were="" obtained="" from="" five="" independent="" experiments="" with="" triplicate="" cultures:="" asterisks="" show="" the="" significance="" of="" differences="" in="" numbers="" of="" viable="" cells="" (as="" percentages="" of="" numbers="" of="" undifferentiated="" cells)="" between="" the="" cultures:="" *="" p="" <="">
Tabel 2. Absorptiecapaciteit zuurstofradicalen (ORAC) van de getestecytokinines(CK's) uitgedrukt als Trolox-equivalenten (TE) op equimolaire basis. Namen, afkortingen en structuren van de CK's worden weergegeven in figuur 1.
2.3. Cytotoxiciteit van cytokininen voor neuronachtige SH-SY5Y-cellen
In tests van de potentiële cytotoxiciteit van de CK's met de Calcein AM-levensvatbaarheidstest [31] vertoonden de meeste een lage toxiciteit ten opzichte van deneuron-achtige SH-SY5Y-cellen. De afname van de levensvatbaarheid tot onder 90 procent werd beschouwd als een drempel voor neurotoxische effecten. De enige twee uitzonderingen waren KR (11,9 procent) en pTR (10,5 procent), in overeenstemming met eerdere bevindingen dat sommigencytokininemetabolieten, met name ribosiden, kunnen cytotoxische effecten hebben [32]. Andere ribosiden, zoals cZR, iPR, oTR, mTR, veroorzaakten geen duidelijke vermindering van deneuron-achtige levensvatbaarheid van SH-SY5Y-cellen (tabel 3). DFO [33,34] en NEC-1 [35,36] die als positieve controles in ons in vitro-model werden gebruikt, bleken ook niet-toxisch te zijn door andere onderzoeken op SH-SY5Y-cellen. Concluderend, voornamelijk derivaten KR en pTR vertoonden een lagere levensvatbaarheid dan 90 procent en werden daarom minder interessant geacht voor verdere evaluatie in beide in vitro modellen van neurodegeneratie.
Tabel 3. Cellevensvatbaarheid vanneuron-achtige SH-SY5Y-cellen na blootstelling aancytokininesvoor 24 u. De levensvatbaarheid wordt uitgedrukt als een percentage van de DMSO-controle.

2.4. Identificatie van neuroprotectieve cytokinines in het SAL-geïnduceerde model van PD
Voor deze testen isneuronaalSH-SY5Y-cellen werden 48 uur gedifferentieerd en vervolgens samen behandeld met 500 uM SAL en elk CK in drie concentraties (0,1, 1, 10 uM). Zoals blijkt uit de stippellijn in figuur 2A, verminderde toepassing van het neurotoxine SAL bij 500 uM de levensvatbaarheid van gedifferentieerde SH-SY5Y-cellen, volgens de Calcein AM-assay, met 30 procent. N-acetylcysteïne (NAC) werd in deze tests als positieve controle gebruikt vanwege het eerder gerapporteerde neuroprotectieve effect in hetzelfde SH-SY5Y-celgebaseerde in vitro-model [37]. Concentraties van 10, 100 en 1000 uM NAC werden gebruikt om gedeeltelijk of bijna volledig herstel in het SAL-model te induceren. NAC was in staat de levensvatbaarheid van de cellen te verhogen bij een concentratie van 100 uM en 1 mM, wat overeenkomt met respectievelijk 83,39 ± 1,74% en 89,21 ± 2,89 procent. NAC's beschermende activiteit bij 100 uM (aangegeven door de stippellijn in figuur 2A) werd gebruikt als een potentiedrempel voor het selecteren van CK's voor verdere tests. Volgens deze opzet zijn de biologisch significante neurobeschermende activiteiten waargenomen met K3G bij 10 uM (81,84 ± 2,36 procent), cZR bij 0,1 uM (81,14 ± 2,30 procent) en 1 uM (81,53 ± 2,24 procent) en iPR bij 1 uM (82,43 ± 2,51 procent). iPR en cZR waren dus effectieve neuroprotectanten bij lagere micro- of submicromolaire concentraties dan NAC. Decytokininescreening onthulde ook dat veel andere metabolieten de levensvatbaarheid van gedifferentieerde SH-SY5Y-cellen die aan SAL zijn blootgesteld, matig kunnen verhogen. Sommige geteste CK's (waaronder tZR, tZMP, mT, mTR, pT en pTR) hadden echter een zeer weinig beschermend effect.

Figuur 2. (A)Neuroprotectiefactiviteit vancytokininesen N-acetylcysteïne (NAC) in SAL-geïnduceerd model van PD onneuron-achtige SH-SY5Y-cellen. De stippellijn toont de NAC-effectdrempel waarbij:cytokinineswerden geselecteerd voor verder testen; de stippellijn telt vervolgens het aantal levende cellen in de Calcein AM-assay na behandeling van de cellen met 500 uM SAL; gezonde controlecellen (CTR, DMSO < 0,1="" procent).="" drievoud="" in="" ten="" minste="" drie="" gescheiden="" dagen.="" (b)="" genormaliseerde="" sh-sy5y-celdood="" na="" propidiumjodidekleuring.="" drievoud="" in="" ten="" minste="" vijf="" onafhankelijke="" dagen.="" *="" p="" vergeleken="" met="" het="" voertuig="" met="" 500="" um="" sal,="" #="" p="" vergeleken="" met="" het="" voertuig="" zonder="" 500="" um="">
Om de anti-PD-activiteiten van de meest actieve natuurlijke CK's te bevestigen, werden de totale celsterftecijfers gekwantificeerd door propidiumjodide (PI) kleuring, die (in tegenstelling tot op celmetabolisme gebaseerde levensvatbaarheidstesten) alleen cellen labelt met een verminderde membraanintegriteit, stervende cellen , en reeds dode cellen [38]. Resultaten werden genormaliseerd met betrekking tot het celsterftecijfer na behandeling met alleen SAL (ingesteld op 100 procent). Zoals weergegeven in figuur 2B, verminderde de NAC-positieve controlestof de celdoodcijfers aanzienlijk bij zowel 100 als 1000 uM (respectievelijk tot 77,3 ± 2,21 procent en 77,5 ± 4,44 procent). Over het algemeen bleek NAC eenneuroprotectiefmiddel met vergelijkbare activiteiten als die in andere onderzoeken op een dosisafhankelijke manier (in het bereik van 50-500 uM) voor SH-SY5Y-cellen [37]. De PI-assay toonde ook aan dat de CK's cZR, K3G en iPR beschermende activiteiten hebben, vooral cZR, die het celdoodpercentage verlaagden tot 71,6 ± 5,08 procent bij 0,1 uM. In tegenstelling tot cZR had K3G omgekeerde dosisafhankelijke effecten, met een maximale activiteit bij 10 uM (verlaging van het celdoodpercentage tot 75,0 ± 3,69 procent) en NPR's activiteit piekte bij 1 uM (verlaging van de snelheid tot 73,9 ± 4,99 procent). Alles bij elkaar genomen, zoals weergegeven in figuur 2, leverden CK's een vergelijkbareneuroprotectiefactiviteit tot 100 uM NAC volgens zowel de levensvatbaarheids- als de cytotoxiciteitstests. Bovendien waren de effectieve concentraties van CK's zoals cZR en iPR veel lager dan die van NAC, in het submicromolaire en micromolaire bereik. Eerdere waarnemingen verkregen na dubbele kleuring met PI en annexine V/PI geven aan dat K apoptose kan verminderen [39], dus onderzochten we ook de effecten van CK's en NAC op oxidatieve stress en caspase-3,7-activering (een goed- bekende apoptosemarker).
2.5. Cytokinines verminderen SAL-geïnduceerde superoxide radicale vorming
Oxidatieve stress (OS) is een belangrijke pathologische oorzaak van verschillende neurodegeneratieve ziekten, en zowel SAL (op > 100 uM) als tetrahydroisochinolines zijn krachtige OS-inductoren [26,40]. We hebben dus ook de vorming van superoxide (een ROS en belangrijke OS-marker) gemeten in aanwezigheid van SAL met en zonder geselecteerde CK's of NAC. Om ervoor te zorgen dat SAL voldoende OS-schade in SH-SY5Y-cellen veroorzaakte om reacties te detecteren, werden cellen gedurende 24 uur blootgesteld aan 500 uM SAL, zoals in eerder werk [37] en in overeenstemming met de hierboven gepresenteerde bevindingen. De cellen werden vervolgens gekleurd met dihydroethidium (DHE) om de vorming van superoxideradicaal te detecteren [41,42]. Zoals te zien is in figuur 3A, werden cellen visueel geobserveerd na labeling met DHE (dat rode fluorescentiesignalen geeft na reactie met superoxide). SAL induceerde een duidelijke stijging van de DHE-fluorescentie, ten opzichte van de niveaus in controle- en NAC-behandelde cellen. Bovendien hadden drie CK's (cZR, K3G en iPR) vergelijkbare visuele effecten als NAC (100 uM) op DHE-fluorescentie. Bovendien was de spectrofotometrische kwantificering met betrekking tot niveaus die werden gedetecteerd in cellen die alleen met SAL waren behandeld (ingesteld op 100 procent), in overeenstemming met microscopie-observatie. Zoals weergegeven in figuur 3B, was het genormaliseerde superoxideniveau in gezonde controlecellen (CTR) minder dan 39 procent, en de positieve controlestof NAC zorgde voor een matige tot volledige reductie van SAL-geïnduceerde ROS-productie bij 100 en 1000 uM (tot 76,3 ± 4,33 en 44,3 ± 5,12 procent), wat suggereert dat de uitputting van glutathion (GSH) een sleutelrol speelt in het model [26]. Interessant genoeg induceerde SAL dramatische verlagingen van het GSH-gehalte van SH-SY5Y-cellen, vergezeld van een verhoging van de OS, tot niveaus die vergelijkbaar waren met die eerder werden waargenomen in een onderzoek dat ook NAC-gemedieerde effecten op de levensvatbaarheid van de cellen, celdood en glutathiongehalte vastlegde [43] . De hier gepresenteerde resultaten laten zien dat NAC ook de vorming van superoxideradicalen tot basale niveaus verminderde (dwz niveaus in met DMSO behandelde controles). CK-ribosides werden getest bij actieve concentraties (0,1-1 uM) samen met K3G en verminderden de superoxideradicaalgehalten van de cellen aanzienlijk tot de volgende niveaus (ten opzichte van die van cellen die alleen met SAL werden behandeld): cZR 80,34 ± 5,99 procent bij 0,1 uM ; K3G 77,1 ± 4,89 procent bij 10 uM; iPR 79,2 ± 5,91 procent bij 1 uM, vergelijkbaar met de effecten van 100 uM NAC. Gezamenlijk geven de orthogonale demonstraties sterk aan dat krachtige anti-OS-activiteit een sleutelrol speelt in de beschermende effecten van NAC en CK's in het SAL-geïnduceerde PD-model. Een correlatie tussen OS-verbetering en neuroprotectie is ook opgemerkt door andere auteurs [29], en verschillende onderzoeken hebben aangetoond dat K en BAP OS-activiteiten direct kunnen verbeteren [44] door de vorming van complexen met Cu2-plus-ionen, wat resulteert in superoxide-dismutase- zoals activiteit [45,46]. CK's zijn echter ook beschreven als indirecte antioxidanten met effecten die worden gemedieerd door inductie van de nucleaire factor erytroïde 2-gerelateerde factor 2 (NRF2) antioxidantresponsroute (iPR) [22] of gedeeltelijk herstel van glutathionperoxidase en SOD-activiteiten ( K) [16]. Bovendien heeft K naar verluidt:neuroprotectiefactiviteiten tegen OS-schade veroorzaakt door H2O2 in SH-SY5Y-cellen [17]. Beide typen gerapporteerde anti-ROS-activiteit van CK's zouden mogelijk de effecten van cZR, K3G en iPR kunnen verklaren bij de reductie van superoxideradicalen in het SAL-geïnduceerde SH-SY5Y-cel-PD-model [47-50].

Figuur 3. (A) Microfoto's die door SAL geïnduceerde oxidatieve stress en oxidatieve stressverlagende activiteiten vancytokininesin de mens gedifferentieerdneuron-achtige SH-SY5Y-cellen gevisualiseerd door fluorescentiemicroscopie na dihydroethidium (DHE) labeling. Staven=50 eh. De afbeeldingen tonen cellen die zijn behandeld met DMSO-oplossing (controles), 500 uM salsolinol (SAL) alleen, en combinaties van 500 uM SAL en 1000 uM NAC (plus NAC), 0,1 uM cZR (plus cZR); 10 uM K3G (plus K3G), 1uM iPR (plus iPR) gedurende 24 uur vóór kleuring met DHE. (B) SAL-geïnduceerde superoxide-radicaalvorming encytokinineof N-acetylcysteïne (NAC) beschermende activiteit. De grafiek toont de kwantificering van met DHE gekleurde cellen met behulp van de Infinite M200 Pro-microplaatlezer (Tecan, Oostenrijk). Drievoud in ten minste vijf onafhankelijke dagen. * P vergeleken met het voertuig met 500 uM SAL, # P vergeleken met het voertuig zonder 500 uM SAL.