Adenovirusvaccin dat afgeknotte SARS-CoV-2 Spike Protein S1-subeenheid bevat, leidt tot een specifieke immuunrespons bij muizen
Dec 12, 2023
Samenvattingct:De ontwikkeling van een efficiënt en veilig vaccin tegen de ziekte van 2019 (COVID-19) is in het licht van de huidige omstandigheden een cruciale aanpak voor het beheersen van de pandemie van het ernstige acute ademhalingsziekte-coronavirus 2 (SARS-CoV-2). In deze studie produceerden we een verkort segment van het geoptimaliseerde SARS-CoV-2-spike-gen (2043 bp, S1 genoemd) dat in staat was te coderen voor een afgeknot S1-eiwit. Het eiwit werd getest om te bepalen of het efficiënte immunisatie bij muizen tegen SARS-CoV kon teweegbrengen-2. De aanwezigheid van het S1-eiwit werd bevestigd met immunofluorescentie en Western-blotting. Een adenovirusvaccin met het S1-genfragment (Ad-S1) werd gedurende vier weken viermaal intramusculair aan muizen toegediend. SARS-CoV-2 S1-eiwit humorale immuniteit werd aangetoond bij alle geïmmuniseerde muizen. Het serum van geïmmuniseerde muizen vertoonde in vitro een uitstekende anti-infectieactiviteit. Bij de muizen werd na vaccinatie met Ad-S1 een robuuste humorale immuunrespons tegen SARS-CoV-2 waargenomen, wat erop wijst dat het adenovirusvaccin de ontwikkeling van vaccins tegen SARS-CoV-2 en andere genetisch verschillende soorten kan ondersteunen. virussen.

cistanche tubulosa-verbetering van het immuunsysteem
Trefwoorden: SARS-CoV-2; vaccins; adenovirale vector; S1-gen; immuniteit
1. Inleiding
De ziekte van het coronavirus 2019 (COVID-19) wordt vaak in verband gebracht met meervoudig orgaanfalen en hoge sterftecijfers [1] en vormt wereldwijd een grote bedreiging voor de openbare veiligheid. Sinds 15 juli 2022 houdt de COVID-19-pandemie wereldwijd aan, met 557.917.904 bevestigde gevallen, waaronder 6.358.899 sterfgevallen, gemeld aan de Wereldgezondheidsorganisatie (WHO). Bovendien zijn er op 11 juli 2022 in totaal 12.130.881.147 vaccindoses toegediend. Daarom is het ontwerpen en ontwikkelen van nieuwe vaccins tegen het coronavirus (nCoV) van groot belang en een van de topprioriteiten op het gebied van de mondiale gezondheidszorg. Het S-eiwit is een sleutelfactor bij het binnendringen van de SARS-CoV-2 ernstige acute luchtwegziekte coronavirus 2 (SARS-CoV-2) in gastheercellen [2,3]. Het eiwit bindt zich aan de gastheerreceptor en zorgt ervoor dat het virus soepel de gastheercel kan binnendringen [4]. N-gekoppelde glycanen steken uit het trimeeroppervlak en versieren het S-eiwit uitgebreid, wat de vouwing van het S-eiwit, de humorale immuniteit en de verwerking van protease door de gastheer beïnvloedt [5]. Het SARS-CoV-2 S-eiwit heeft een lagere N-gekoppelde glycaandichtheid dan andere door het menselijk pathogene coronavirus geïnduceerde S-eiwitten [6]. Daarom kan het S-eiwit zeer immunogeen zijn en is het een belangrijk doelwit van neutraliserende antilichamen. Het S-eiwit heeft drie structurele domeinen, waarvan het S1-domein het belangrijkste oppervlakteantigeen van het S-eiwit is [4]. Vanwege de moeilijkheid om grote recombinante eiwitten te produceren (het extracellulaire domein van het proteïne S is ongeveer 1300 aminozuren) en het risico op antilichaamafhankelijke versterking (ADE) van infectie, zijn S1 (ongeveer 700 aminozuren) en zijn receptorbindende domein (RBD, ongeveer 200 aminozuren) worden algemeen beschouwd als de meest aantrekkelijke potentiële doelwitten voor een coronavirusvaccin [7,8]. Humaan adenovirus serotype 5 (HAdV-C5) wordt in de basisvirologie veel gebruikt als gentherapie- en vaccinafgiftevector [9]. HAdV-C5 heeft een natuurlijke diversiteit en kan de meeste gastheren parasiteren, wat de basis vormt voor de ontwikkeling van dierproeven. Recombinante adenovirusvectoren met repliceerbaarheid en replicatiedefecten geconstrueerd uit HAdV-C5 zijn op grote schaal gebruikt bij vaccinafgifte en gentherapie [9,10]. Momenteel zijn adenovirussen goedgekeurd als vaccins tegen acute luchtweginfecties en er zijn veel proeven met dergelijke vaccins geweest, zoals tegen malaria en HIV-1 [9]. In dit artikel beschrijven we een SARS-CoV-2 adenovirusvectorvaccin met menselijke replicatiedeficiëntie en de bereiding en toepassing ervan. In deze studie werd het adenovirusvaccin als volgt geconstrueerd: de vector was het menselijke replicatiedefecte adenovirus HAdV-C5 met E1- en E3-deletie, het skeletplasmide was recombinant adenovirus met pBHGlox∆E1,3Cre, de verpakkingscellijn was HEK293-cellen, en het doelgen was het ingekorte S1-eiwitgen van SARS-CoV-2. S1-eiwitexpressie in het vaccin werd geïdentificeerd met Western-blot- en immunofluorescentietesten. Om de kwaliteit van de immuunresponsen te bepalen die worden geïnduceerd door de op spikes gebaseerde vaccinkandidaten, werd de antilichaamrespons na vaccinatie in detail onderzocht. Het immuunvoordeel van het vaccin werd geëvalueerd met een bindingsantilichaamtest (enzym-linked immunosorbent assay [ELISA]) en een neutralisatie-antilichaamtest. Onze bevindingen vormen de basis voor de ontwikkeling en evaluatie van COVID-19-vaccins en -behandelingen op basis van het S1-eiwit.
2. Materialen en methode
2.1. Cellen en dieren
In dit onderzoek werden HEK293- en Vero E6-aapniercellijnen gebruikt. Beide cellijnen werden gekweekt in Dulbecco's gemodificeerd Eagle's medium (DMEM) aangevuld met 2% foetaal runderserum (FBS) en 1% penicilline en streptomycine bij 37 °C met 5% CO2 en verzadigde vochtigheid. Twintig vrouwelijke C57BL/6-muizen (6-8 weken) werden gekocht bij het Zhejiang Animal Experimental Center, provincie Zhejiang. De muizen werden willekeurig verdeeld in twee groepen met 10 muizen in elke groep. Eén groep werd geïmmuniseerd (100 µl intraperitoneale injectie) met een Ad5-vector die het SARS-CoV-2-spike-eiwit (Ad5-S) tot expressie bracht en de andere met PBS (100 µl intraperitoneale injectie) als controle. De totale hoeveelheid virus was 5 x 10⁹ VP. Alle muizen werden geïmmuniseerd met DO/D14 intramusculaire injectie [11,12]. Op D14 werd 100 µl perifeer bloed afgenomen, serum afgescheiden en de tweede injectie twee uur na de bloedafname gegeven. Op D28 werd bloed verzameld door retro-orbitale punctie en werd serum gescheiden. Bindende antilichamen werden 3 dagen na elke bloedafname gedetecteerd, neutraliserende antilichamen werden 7 dagen na elke bloedafname gedetecteerd en cytokinen werden 7 dagen na de tweede bloedafname gedetecteerd. Alle muizen werden geëuthanaseerd; alle tests werden uitgevoerd in strikte overeenstemming met de "Richtlijnen voor de verzorging en het gebruik van proefdieren van de Volksrepubliek China" en goedgekeurd door de Ethische Raad van de Zhejiang Shuren Universiteit.
2.2. Vaccins
Alle SARS-CoV-2-stammen die in dit onderzoek zijn gebruikt, zijn met toestemming verzameld bij COVID-19-patiënten. Het State Key Laboratory for Diagnosis and Treatment of Infectious Diseases ontwikkelde een adenovirusvaccin (Vero-cel, WuHan-stam, GISAID-nummer: EPI_ISL_415711) tegen SARS-CoV-2 en vervolgens de Het vaccin is vervaardigd in een omgeving die voldoet aan het bioveiligheidsniveau (BSL). De vaccinspecificatie is 0,5 ml/dosis en bevat Tris, NaCl, rietsuiker, MgCl2.6H2O, C6H9N3O2, absolute ethanol en het SARS-CoV-2 S1-eiwit.
2.3. Recombinante adenovirusconstructie
De SARS-CoV-2 S1-eiwitsequentie (nr. QRU91950.1) werd verkregen van PubMed. Volgens de gendegeneratie werd de geoptimaliseerde codonnucleotidesequentie die geschikt is voor expressie van zoogdiercellen ontworpen op basis van de premisse dat de aminozuursequentie van het producteiwit gecodeerd door het SARS-CoV-2 S1-eiwit onveranderd bleef. De totale lengte was 2043 bp. De 50-voorlopersequentie werd gesynthetiseerd met weefselplasminogeenactivator (tPA) en de sequentie die codeert voor SARS-CoV-2 S1-aminozuur 2-688 en de tPA-voorlopersequentie werden geligeerd. Een Kozak-sequentie en Spel-restrictieplaats werden vóór het startcodon toegevoegd en de XbaI-restrictieplaats werd na het terminatiecodon toegevoegd. De nucleotidesequenties van de bovengenoemde genen werden door Sangon Biotech gesynthetiseerd en in pUC18 gekloneerd om het gekloneerde plasmide van het synthetische gen te verkrijgen. De gesynthetiseerde S1-gensequentie en vector pDC316 werden gedigereerd met restrictie-endonucleasen Spel en XbaI. Het doelfragment en de vector werden uit de gel gehaald en verbonden om een shuttle-plasmide te vormen. Het SARS-CoV-2 shuttle-plasmide werd verpakt met het skeletplasmide pBHGloxd∆E1 en 3Cre van het AdMax-adenovirussysteem door co-transfectie van HEK293-cellen. De primaire virusoplossing werd verkregen na herhaald invriezen-ontdooien en centrifugeren, en het virus werd na plaquezuivering geamplificeerd en gekweekt.
cistanche voordelen voor mannen versterken het immuunsysteem
Klik hier om de producten van Cistanche Enhance Immunity te bekijken
【Vraag om meer】 E-mail:cindy.xue@wecistanche.com / Whats-app: 0086 18599088692 / Wechat: 18599088692
2.4. Bepaling van de adenovirustiter
HEK293-cellen in goede gezondheid werden geselecteerd en opnieuw gesuspendeerd om een celsuspensie van 5.0 × 10⁵ cellen/ml te bereiden, die werd uitgezaaid in een 24-putjesplaat (1 ml/putje ) en gekweekt bij 37 ◦C in een 5% CO2-omgeving. Het monster werd serieel tienvoudig verdund en een verdund monster (0,1 ml) van 10−5 tot 10−8 cellen werd geïnoculeerd op een 24-putjesplaat . Vervolgens werden de platen gedurende 48 uur blootgesteld aan infectie bij 37 ◦C met 5% CO2. Vervolgens werd het kweekmedium verwijderd, werd voorgekoelde methanol (0,5 ml) toegevoegd en werden de monsters gedurende 20 minuten bij -20 ◦C gefixeerd. Na fixatie werden de monsters gewassen met fosfaatgebufferde zoutoplossing (PBS) en gedurende 1 uur bij 37 °C geblokkeerd met 1% runderserumalbumine (BSA, 0,2 ml). Vervolgens werden de primaire (Mouse Anti-Adenovirus Hexon, AbD Serotec 04000079, 1:2000) en secundaire (Goat pAb to MS IgG2a(HRP), Abcam ab97245, 1:1000) antilichamen toegevoegd en gedurende 1 uur geïncubeerd, gedurende welke PBS werd gebruikt voor het wassen. Na incubatie werd een nieuw bereide werkoplossing (0,2 ml) toegevoegd en gedurende 5-10 minuten bij kamertemperatuur geïncubeerd. Vervolgens werd de werkoplossing weggegooid, de monsters werden gewassen met PBS en opnieuw werd PBS (1 ml) toegevoegd. Het gemiddelde aantal positieve cellen in het microscopische veld (cat. CKX53, OLYMPUS Research Inverted System Microscope) werd berekend, waarbij een gradiënt met 5-50 positieve cellen in het gezichtsveld werd geselecteerd en ten minste vijf gebieden willekeurig werden geselecteerd voor telling . Het aantal visuele velden in elk putje van de 24-putjesplaat werd berekend. Vervolgens werd de virustiter berekend volgens de volgende formule (1):
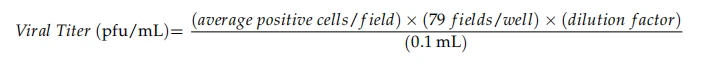
2.5. Realtime PCR
Om HEK293-cel-mRNA-expressie na virale infectie te detecteren, hebben we intermediair RNA geëxtraheerd volgens de TRIzol-gebruiksaanwijzing (Invitrogen, Waltham, MA, VS). Totaal RNA werd geëxtraheerd met behulp van TRIzol en verwerkt met RQ1 RNase-vrij DNase I (Promega, Madison, WI, VS) om resterend DNA te elimineren. Complementair DNA (cDNA) werd verkregen door reverse transcriptie van het geëxtraheerde RNA met behulp van een PrimerScriptTM RT Reagent Kit met gDNA Eraser Kit (Takara, Kusatsu, Japan). DNA-fragmenten werden gegenereerd met de specifieke primers P1 (50 -GGTGATTCTTCTTCAGGTTGGA-30 ) en P2 (50 - GTTTCTGAGAGAGGGTCAAGTG-30 ) van het doelgen (S1). Het gen werd geamplificeerd met primers P3 (50 -GTCTTCACCACCATGGAGAA-30 ) en P4 (50 -TAAGCAGTTGGTGGTGCAG-30 ) als de interne controle (GAPHD).
2.6. Westerse vlek
Het cellysaat en het supernatant werden gescheiden met natriumdodecylsulfaat-polyacrylamidegelelektroforese (SDS-PAGE) en vervolgens overgebracht naar polyvinylideenfluoride (PVDF)-membranen. De blots werden zichtbaar gemaakt met Western blot-beeldvormingsapparatuur (Bio-Rad, Hercules, CA, VS). In het kort werden de membranen overgebracht naar TBST (50 ml Tris-HCl, pH 7,5, 8 g NaCl [0,5 ml], 0,2 g KCl, 0,5 ml Tween -20) met 5% magere melkpoeder en 1 uur geschud op een ontkleurende shaker bij kamertemperatuur. De membranen van de experimentele en controlegroepen werden uit de afdichtingsoplossing verwijderd en geïncubeerd met het primaire antilichaam: [SARS-CoV-2 (2019-nCoV) Spike Antibody (1:5000, cat. #40591- T62, Sino Biological, Beijing, China)] bij kamertemperatuur. De primaire antilichamen werden geschud en een nacht op een ontkleuringsschudapparaat bij 4 °C geïncubeerd. De vlek werd gespoeld met TBST-oplossing en 2 uur geïncubeerd met het secundaire antilichaam [geit anti-konijn immunoglobuline G (IgG) H&L (HRP) (1:10.000, cat. #ab6721, Abcam, Cambridge, VK)]. Na spoelen werden de blots gedurende 1 minuut geïncubeerd met een LumiBest ECL Substraat-oplossingskit (cat. #4AW011-100, 4A Biotech) en vervolgens in een beeldsensor waargenomen.
2.7. Immunofluorescentietest
HEK293-cellen (3 x 10⁶/putje) werden in platen met 12-putjes gezaaid. Na 48 uur werden de cellen geïnfecteerd met adenovirus dat het S1-gen bevatte (Ad-S1). Na 48 uur werd het medium afgezogen en werden de cellen eenmaal gewassen met PBS dat 2% BSA bevatte, en gedurende 15 minuten gefixeerd met methanol die gedurende 15 minuten was voorgekoeld bij -20 ◦C. Na drie keer wassen met 2% BSA in PBS werden de cellen gedurende 10 minuten gepermeabiliseerd met 0,5% Triton X-100. Vervolgens werden de cellen gedurende 1 uur geblokkeerd met 2 ml 2% BSA, de blokkerende oplossing werd weggegooid en de cellen werden driemaal gewassen met PBS. Vervolgens werd aan elk putje 2 ml primair antilichaam [SARS-CoV-2 (2019-nCoV) Spike Antibody (1:2000, cat. #40591-T62, Sino Biological)] toegevoegd en geïncubeerd bij kamertemperatuur gedurende 1 uur of een nacht bij 4 ◦C. Vervolgens werd het monster driemaal gespoeld met 2% BSA gedurende 5 minuten per spoeling. Vervolgens werd 2 ml secundair antilichaam [geit anti-konijn IgG H&L (Alexa Fluor 488) (1:1000, cat. #550037, ZenBio)] aan elk putje toegevoegd en 1 uur bij kamertemperatuur geïncubeerd. Vervolgens werden de monsters driemaal gespoeld met 2% BSA gedurende 5 minuten per spoeling. 40,6-diamidino-2-fenylindool (DAPI)-oplossing (2 ml, 1 mg/ml) (1:400, cat. #S0001, Bioss, Woburn, MA, VS) werd aan elk putje toegevoegd en reageerde gedurende 10 minuten in het donker. De analyse werd waargenomen met een EVOS™ M7000-beeldvormingssysteem (cat. #AMF7000, Invitrogen).
2.8. ELISA
SARS-CoV-2 S-eiwit (1 µg/ml) werd een nacht in platen met 96-putjes (100 µl/ml) gecoat met 0. 05 M bicarbonaatbuffer. Na wassen met PBST (0,2 g KH2PO4, 2,9 g Na2HPO4·12H2O, 8,0 g NaCl, 0,2 g KCl, 0,5 ml Tween-20, water toevoegen aan 1000 ml) vijf keer werd een blokkeringsoplossing toegevoegd en gedurende 1 uur bij 37 ◦C geïncubeerd. Het serummonster werd verdund en aan elk putje toegevoegd (100 µl/putje). Na 1 uur incubatie bij 37 °C werden de monsters vijf keer gewassen met PBST. Het primaire antilichaam [SARS-CoV-2 (2019-nCoV) Spike Antibody (1:2000, cat. #40591-T62, Sino Biological)] werd toegevoegd en gedurende 1 uur geïncubeerd. de monsters werden vijf keer gewassen met PBST, gevolgd door 1 uur incubatie bij 37 °C met mierikswortelperoxidase-geconjugeerd secundair antilichaam [geit anti-konijn IgG H&L (HRP) (1:10.000, cat. #ab6721, abcam)] en vijf keer wast met PBST. Na het gedurende 5 minuten toevoegen van 3, 30, 5 en 50-tetramethylbifenylanhydride werd de reactie gestopt met 2 M zwavelzuur. De optische dichtheid werd gemeten bij 450 nm en 630 nm door een enzymlabelingsinstrument (Molecular Devices, SpectraMax 190) en vervolgens aangepast aan een standaardcurve.

Voordelen van cistanche tubulosa-versterk het immuunsysteem
2.9. Cytokinebepaling
De plaat (cat. #T-k15048D-1, MSD) werd drie keer gewassen met 150 µl/putje wasbuffer en een bereid monster van 50 µl werd aan elk putje toegevoegd. Vervolgens werd de plaat afgesloten met een zelfklevende plaatafdichting en gedurende 2 uur bij kamertemperatuur onder schudden geïncubeerd. Vervolgens werd de plaat driemaal gewassen met 150 µl/putje wasbuffer en werd 25 µl detectie-antilichaamoplossing aan elk putje toegevoegd. De plaat werd opnieuw afgesloten en gedurende 2 uur bij kamertemperatuur onder schudden geïncubeerd. Vervolgens werd de plaat driemaal gewassen met ten minste 150 µl wasbuffer per putje; Aan elk putje werd 150 µl 2x Read Buffer T (MSD) toegevoegd en de plaat werd geanalyseerd op een MSD-instrument.
2.10. Neutraliserend antilichaam
2.10.1. Pseudovirus-neutralisatietest
De muizenserumneutralisatieactiviteit werd getest met behulp van een vesiculair stomatitisvirus-pseudoviraal systeem (VSV). Het serum werd gedurende {{0}},5 uur bij 56 ◦C geïnactiveerd in een waterbad en vervolgens serieel verdund tot het vereiste bereik. HEK293-cellen werden uitgeplaat in een plaat met 96-putjes. Het verdunde serum werd gemengd met 200 CCID50 (de virusdosis die 50% van de celcultuur kan infecteren)/100 µl van de virussuspensie in een verhouding van 1:1 en in een CO2-incubator (37 ± 1 ◦C) geplaatst voor 2 uur. Vervolgens werd aan elk putje 100 µl virusonderhoudsoplossing met 0,5% penicilline-streptomycine dubbel antilichaam toegevoegd, en het geneutraliseerde mengsel werd geïnoculeerd in een 96-putjesplaat met cellen van 100 µl per putje, met twee herhaalde putjes voor elke verdunning. Tegelijkertijd werd een normale celcontrole ingesteld en werden de cellen 96 uur in een CO2-incubator (37 ± 1 ◦C) geïncubeerd. Vervolgens werd 200 CCID50/100 µl virusoplossing verdund tot 10-1~10-3. Het celkweekmedium in de 96-putjesplaat werd weggegooid, 150 µl van de virusonderhoudsoplossing werd aan elk putje toegevoegd en de verdunning van de virusoplossing werd geënt met een concentratie van 10-1~{{33} } in putjes van de 96-putjesplaat (50 µl per putje). Elke verdunning werd herhaald in 8 putjes; tegelijkertijd werd een normale celcontrole ingesteld, gevolgd door 96 uur kweken. De veranderingen in cel-CPE werden waargenomen onder een omgekeerde microscoop. De normale celcontrole mag geen cytopathische veranderingen vertonen, en de positieve controle moet CPE-veranderingen vertonen. Neutralisatie-eindpunten (serumverdunningen omgezet in logaritmen) werden berekend door de CPE te observeren. Het seronegatieve/positieve criterium was 1:12 als het positieve/negatieve criterium,<1:12 was negative, and ≥1:12 was positive.
2.10.2. Live neutralisatietest
De neutralisatieactiviteit in muizenserum werd geëvalueerd door middel van een levende neutralisatietest. Het verdunde serum werd gemengd met SARS-CoV-2 en gedurende 1 uur bij 37 ◦C geïncubeerd. Het mengsel werd toegevoegd aan een 96-putjesplaat om de Vero E6-cellen te infecteren. Na 72- uur incubatie bij 37 ◦C werd het viruscytopathische effect (CPE) waargenomen onder een vergroting van ×40 en werd de neutralisatietiter (het omgekeerde van 50% serumverdunning vereist om de virusinfectie te neutraliseren) berekend. De bovenstaande procedures werden allemaal uitgevoerd in een omgeving van bioveiligheidsniveau 3.
2.11. Statistische analyse
Statistische analyses werden uitgevoerd door middel van een t-test met twee steekproeven met behulp van SPSS 26. p-waarden kleiner dan of gelijk aan 0.05 werden als significant beschouwd. De centrale tendens werd gemeten met de geometrische gemiddelde titer (GMT).
3. Resultaten
3.1. Recombinante adenovirusconstructie
Het recombinante adenovirus-shuttleplasmide pAdeno-CMV-S1 met correcte insertie werd verkregen; het structuurdiagram ervan wordt getoond in Figuur 1. Het recombinante adenovirus bevatte het HAdV-C5-genoom zonder het El/E3-gebied. Een schematisch diagram van de recombinante adenovirusvector verkregen door de shuttle-plasmide- en cytoskeletplasmide-transfectie in HEK293-cellen wordt getoond in Figuur 1.
3.2. Karakterisering van recombinant adenovirus
Het recombinante plasmide dat het doelgen bevatte, werd geïdentificeerd door middel van PCR (zie Figuur 2A voor resultaten op het gebied van gelelektroforese). Dit was een herhaald experiment. De primersequenties waren MCMV-F gttataagaggcgcgaccag en S1-R acaataagtagggactgggtc, en sequencing bevestigde dat de sequentie consistent was met het ontwerp. SARS-CoV-2 S1-expressie in de cellen werd gedetecteerd met Western-blotting (Figuur 2B) en indirecte immunofluorescentie (Figuur 2C). De bandkleuring (~75 kDa) werd gedetecteerd door Western-blotting en kwam overeen met de verwachte bandpositie. Op transcriptioneel niveau werd de in vitro expressie van S1 gedetecteerd door PT-PCR. De resultaten toonden aan dat de expressie van S1-mRNA in HEK-293-cellen significant hoger was dan die in de controlegroep.
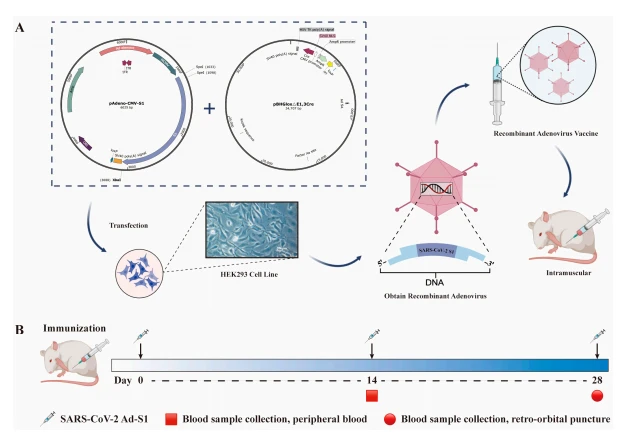
Figuur 1. Constructie van recombinant adenovirusvaccin en experimentele strategie. (A) pAdeno-CMV-S1 is een recombinant adenovirus-shuttleplasmide dat het doelgen S1 bevat. pBHGlox∆E1,3Cre is het skeletplasmide van het adenovirus. pBHGlox∆E1,3Cre en pAdeno-CMV-S1 werden geëxtraheerd met een QIAGEN plasmide-extractiekit (Beijing North Yitao Trading Co., LTD., Beijing, China). Eén dag vóór de transfectie werden HEK293-cellen in een celkweekfles van 25 cm2 overgebracht. Het kweekmedium was DMEM met 5% FBS zonder antibiotica. Op de tweede dag werd 60-80% van de cellen geselecteerd en werd de transfectieoplossing aan de cellen toegevoegd. Na 7 dagen transfectie werden de cellen afgeschraapt, gecentrifugeerd, het supernatant weggegooid en de cellen werden gereanimeerd met PBS. De cellen werden herhaaldelijk ingevroren en ontdooid bij −80 ◦C en 37 ◦C. Na centrifugatie bevatte het supernatant de primaire virusoplossing. De recombinante adenovirusstam werd gezuiverd, geamplificeerd en na verdere verwerking verkregen en werd Ad-S1 genoemd. Het vaccin werd intramusculair in de muizen geïnjecteerd voor vervolgstudies. (B) De afgebeelde tijdschaal van immunisatie en bloedafname.
3.3. Adenovirus-titer
In dit experiment werd een gemiddelde van zes positieve cellen berekend in vijf microscopische velden, en het virus in het putje werd 108 keer verdund. Op basis van de formule die wordt beschreven in de sectie Materialen en methoden was de adenovirustiter 4,74 x 10¹¹ plaquevormende eenheden (pfu)/ml (Figuur 2D).
3.4. Cellulaire immuniteit na vaccinatie
Tijdens de testperiode waren er statistisch significante veranderingen in serumcytokinen (p kleiner dan of gelijk aan 0.05), waaruit voornamelijk bleek dat de concentratie van keratinocytchemoattractant/menselijk groeigereguleerd oncogen (KC/GRO) hoog was. afgenomen, en de concentraties van IFN- , IL-10, IL-12p70, IL-1 , IL-2, IL-4, IL{{10} } en TNF- waren verhoogd, terwijl de concentratie van IL-6 niet significant veranderde (Figuur 3).
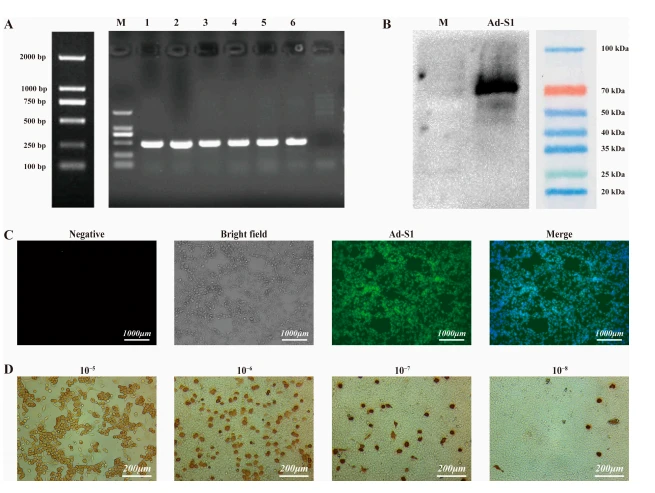
Figuur 2. Identificatie van recombinant HAdV-C5–SARS-CoV-2 S1-eiwit en bepaling van de adenovirustiter. (A) PCR-detectie van het recombinante plasmide met het doelgen S1. (B) Western blot-detectie van SARS-CoV-2. HEK293-cellen met exponentiële groei werden 48 uur geïnfecteerd met SARS-CoV-2, daarna werd het cellulaire eiwit geëxtraheerd en gescheiden door SDS-PAGE. SARS-CoV-2-expressie werd bevestigd door Western-blotting met anti-konijn-IgG van geiten. (C) Immunofluorescentiemicroscopie van HEK-293-cellen geïnfecteerd met Ad-S1 (groen). De cellen werden tegengekleurd met 40, 6-diamidino- 2-fenylindool (DAPI) om de kernen te kleuren. Schaalbalk 1000 µm. (D) Voor de meting werd een plaquetest gebruikt. Microfoto's met de verdunning van 10-5, 10-6, 10-7 en 10-8 (van links naar rechts).

Figuur 3. Ad-S1 induceerde veranderde plasmaspiegels van type 1/2 cytokines, type 1 interferonen en andere cytokines. De resultaten werden gedetecteerd door 7 dagen na de eerste immunisatie bloed van de muizen af te nemen. De gegevens worden gepresenteerd als box- enwhisker-spreidingsdiagrammen. Elke cirkel vertegenwoordigt één individu. p-waarden werden berekend met behulp van een t-test met twee steekproeven.
3.5. Detectie van anti-SARS-CoV-2 S1-antilichamen na immunisatie
ELISA onthulde dat SARS-CoV-2-specifieke antilichamen aanwezig waren in de muizen die waren geïnjecteerd met de eerste en tweede Ad-S1, maar niet in de muizen die waren geïnjecteerd met de controle-adenoviruscapside of PBS-oplossing (Ad/PBS) (Figuur 4A). IgG-titers van 1:210 en 1:212 werden gedetecteerd in de met Ad-S1-gevaccineerde muizen twee weken na respectievelijk de eerste en tweede immunisatie. De verdunningstiter op 28 dagen na vaccinatie (D28, GMT 2297,4) was 6,1- maal hoger dan die op D14 (GMT 378,9).

Figuur 4. Ad-S1 induceerde hoge titers van antilichamen (A) en neutralisatieactiviteit (B, C) bij muizen. (A) ELISA van SARS-CoV-2-specifiek serum IgG van Ad-S1-geïmmuniseerde muizen. (B) Analyse van pseudovirusactiviteiten van serum van de met Ad-S1-geïmmuniseerde muizen. (C) Analyse van de neutraliserende activiteiten van serum van de met Ad-S1-geïmmuniseerde muizen
3.6. Neutraliserende antilichaamtest
SARS-CoV-2-uitdaging van Vero E6-cellen maakte de detectie van neutraliserende activiteit in het geïmmuniseerde muizenserum mogelijk (Figuur 4B, C). De D14- en D28-neutralisatietiters van de Ad-S1-geïmmuniseerde Vero E6-cellen tegen SARS-CoV{{10}} levende virusuitdaging in vitro waren respectievelijk 1:24,3 en 1:26,3. De pseudovirustest leverde vergelijkbare resultaten op als die van de levende virustest, met neutralisatietiters tot respectievelijk 1:28,1 en 1:29,6 op D14 en D28. De neutraliserende titer van het D28-pseudovirus (GMT 769,0) was 2,7- maal hoger dan die van D14 (GMT 283,7).
4. Discussie
We have been working to develop vaccines to stop the COVID-19 pandemic and its rapid spread. The hunt for an effective vaccination against SARS-CoV-2 continues and existing vaccine development strategies include whole virus particle vaccines, live attenuated virus vaccines, purified virus subunit vaccines, and genetic vaccines [13–17]. The epitopes on spike proteins detected in infected serum are highly antigenic, with the ability to induce a strong humoral immune response and neutralize antibodies in individuals infected with SARS-CoV-2 and recovered from COVID-19 [18,19]. The S protein appears to be an ideal target for vaccination against SARS-CoV-2 infection [20]. The S protein S1 subunit induced effective immunity against SARS-CoV-2 and protected against SARS-CoV-2 in animal models [21,22]. The SARS-CoV-2 truncated N protein has a better expression effect than the N protein [23]. Based on this, we selected the truncated S1 protein in this experiment. In other studies, more than 90% of the neutralization activity of the Moderna mRNA vaccine was caused by the RBD antibody, and the neutralization titer directly decreased from >1000 tot<25 after the RBD antibody had been eliminated [24]. Higher levels of RBD-specific IgG were associated with increased serum neutralization [25]. Evidently, the S protein demonstrates a greater immune response to the RBD region, and the S1 protein containing RBD can induce neutralizing antibodies with a higher titer than the S protein [26]. Antigens delivered by adenovirus vectors induce strong cellular and humoral immunity after a single immunization, making them useful as an emergency prevention tool in a pandemic [27]. Adenovirus-based vaccine strategies are therefore an important part of the fight against SARS-CoV-2 infection.
In deze studie hebben we een recombinant adenovirus SARS-CoV-2-vaccin geconstrueerd dat de SARS-CoV-2 S1-subeenheid bevat en dit Ad-S1 genoemd. Net als CanSinoBIO, dat is goedgekeurd voor marketing [28], hebben we HAdV-C5 in dit vaccin gebruikt. Adenovirus wordt veel gebruikt bij recombinante gentherapie en als vaccinvector. Het seropositieve percentage van HAdV-C5 is echter maar liefst 75-80% in de normale populatie [29]. Dit impliceert dat immuniteit vóór opslag tegen HAdV-C5-vectoren de door vaccins geïnduceerde immuniteit aanzienlijk vermindert. ChAdOx1 nCoV-19 is ontwikkeld aan de Universiteit van Oxford in het Verenigd Koninkrijk en maakt gebruik van een chimpansee-adenovirusvector die daarentegen een lager seropositief percentage heeft bij mensen, en wanneer positief, meestal een lagere serumantilichaamtiter vertoont [30] . Daarom kunnen adenovirusvectoren die reeds bestaande immuniteit kunnen omzeilen, worden onderzocht om de beschermende werkzaamheid van het adenovirusvaccin te verbeteren. In de huidige studie werd de serumstatus van muizen voor en na immunisatie bepaald door middel van ELISA en neutralisatietests en leverde bewijs op van humorale immuniteit voor vaccinkandidaten. Het serum dat werd geproduceerd na intramusculaire injectie van het vaccin bij muizen beschermde Vero E6-cellen effectief tegen SARS-CoV-2-infectie in vitro (Figuur 4). We ontdekten ook een sterkere immuunrespons en betere bescherming bij de muizen na een tweede immunisatie (Figuur 4). Onze experimentele resultaten zijn vergelijkbaar met reguliere experimentele resultaten.
Naarmate het onderzoek naar SARS-CoV-2 voortduurt, hebben verschillende onderzoeken aangetoond dat de cytokinestorm die het gevolg is van een SARS-CoV-2-infectie de productie van T-cellen kan beïnvloeden, waardoor het voor patiënten moeilijk wordt om op lange termijn immuniteit te behouden tegen SARS-CoV-2 [31]. Daarom is het noodzakelijk om te bepalen of Ad-S1 T-cel-gemedieerde immuniteit bij muizen kan induceren. Onze resultaten toonden aan dat de IFN- en IL-12-concentraties toenamen en de IL-4-concentraties afnamen in de Ad-S1-groep, wat aangeeft dat de vaccin-geïnduceerde overleving en groei van Th1-cellen bij de muizen. De IL-12-, IL-10- en TNF-secretie door de Th1-cellen namen lichtjes toe in de experimentele groep. Deze resultaten gaven aan dat Ad-S1 effectief een Th1-vooringenomen T-celrespons induceerde bij de muizen [32]. De verhoogde IL-5 gaf aan dat Th2-cellen ook deelnemen aan de immuunrespons en bepaalde effecten veroorzaken. De KC/GRO-concentratie in de experimentele groep was aanzienlijk verlaagd vergeleken met die van de PBS-controlegroep, wat mogelijk te wijten was aan de verminderde chemotaxis van neutrofielen die de ontstekingsreactie onderdrukte en ervoor zorgde dat de bijwerkingen van het vaccin enigszins onder controle konden worden gehouden. Dit zou gunstiger zijn voor mensen met een verzwakt immuunsysteem, zoals ouderen of patiënten die chemotherapie ondergaan. Li M., et al. [29] ontwikkelden een adenovirusvaccin met Ad68 als vector. De resultaten toonden aan dat de in vivo neutraliserende activiteit van SARS-CoV-2 binnen twee weken na intramusculaire immunisatie van BALB/c-muizen kon worden gedetecteerd en vervolgens bleef stijgen, en dat de titer van neutraliserende antilichamen (PRNT ID50) om acht uur 957,3 bereikte. weken. Ondertussen blijkt uit de studie van Liu J., et al. [33] Er werden vaccins ontwikkeld die AdC6 en AdC68 als vectoren gebruikten; zowel bindende als neutraliserende antilichaamreacties na immunisatie werden 14 dagen na de dosis gegenereerd, met een IgG-titer van 7108 (geometrisch gemiddelde titer, GMT; AdC6) en 5489 (GMT, AdC68). De neutralisatietiter 50 (NT50) van de pseudovirusneutralisatietest was 125 (GMT, AdC6) en 67 (GMT, AdC68).

cistanche tubulosa-verbetering van het immuunsysteem
In het huidige onderzoek hadden muizen die waren gevaccineerd met Ad-S1 IgG-titers van 1:1010 en 1:122 gedetecteerd door ELISA twee weken na respectievelijk de eerste en tweede immunisatie. De verdunningstiter van ad-s1 was 378,9 (GMT) 14 dagen na inenting en 2297,4 (GMT) 28 dagen na inenting. In de neutralisatie-antilichaamtest vertoonden Vero E6-cellen die waren geïmmuniseerd met Ad-S1 respectievelijk 1:24,3 en 1:26,3 neutralisatie op D14 en D28 tegen levende SARS-CoV-2 virusuitdaging in vitro. De neutralisatietiters van het pseudovirus op D14 en D28 waren respectievelijk 283,7 (GMT) en 769,0 (GMT). Het vaccin in deze studie was dus effectiever in termen van de immuunrespons in het muismodel.
Vanwege de beperking van de experimentele omstandigheden hebben we geen enzymgekoppelde immunosorbent spot (ELISpot) analyse uitgevoerd van de miltimmuuncellen van de experimentele muizen. Bovendien konden experimenten met aanvalsbescherming van SARS-CoV-2 op muizen niet worden uitgevoerd vanwege de beperkingen van het fysieke beschermingslaboratorium. We hebben echter vastgesteld dat het vaccin een hoge werkzaamheid had in muismodellen en gebruikt kon worden als een ideale reservevaccinstam. Bovendien moeten de immunogeniciteit, veiligheid en effectiviteit van toekomstige SARS-CoV-2-vaccinkandidaten worden onderzocht in aanvullende diermodellen (bijv. konijnen, primaten, wasberen, honden), aangezien muismodellen menselijke immunologische vaccins mogelijk niet volledig dupliceren. functies.

cistanche plantverhogend immuunsysteem
5. Conclusies
De gegevens verkregen uit onze preklinische onderzoeken naar het adenovirusvaccin hebben aangetoond dat het vaccin voldoende veiligheid en effectiviteit heeft. Daarom kan het een veelbelovend en haalbaar profylactisch vaccin tegen SARS-CoV-2-infectie zijn.
Referenties
1. Trougakos, IP; Stamatelopoulos, K.; Terpos, E.; Tsitsilonis, OE; Aivalioti, E.; Paraskevis, D.; Kastritis, E.; Pavlakis, GN; Dimopoulos, MA Inzichten in de SARS-CoV-2 levenscyclus, pathofysiologie en gerationaliseerde behandelingen die zich richten op COVID-19 klinische complicaties. J. Biomed. Wetenschap 28, 9, 2021. [Kruisref]
2. Pillay, TS Gen van de maand: het 2019-nCoV/SARS-CoV-2 nieuwe coronavirus-spike-eiwit. J. Clin. Pathol. 2020, 73, 366–369. [Kruisref]
3. Sheinin, M.; Jeong, B.; Paidi, RK; Pahan, K. Regressie van longkanker bij muizen door intranasale toediening van SARS-CoV-2 Spike S1. Kankers 2022, 14, 5648. [Kruisref]
4. Kadam, SB; Sukhramani, GS; Bishnoi, P.; Pable, AA; Barvkar, VT SARS-CoV-2, het pandemische coronavirus: moleculaire en structurele inzichten. J. Basismicrobiol. 2021, 61, 180–202. [Kruisref]
5. Sternberg, A.; Naujokat, C. Structurele kenmerken van coronavirus SARS-CoV-2 spike-eiwit: doelstellingen voor vaccinatie. Leven Wetenschap. 2020, 257, 118056. [Kruisref] [PubMed]
6. Muren, AC; Tortorici, MA; Frenz, B.; Snijder, J.; Li, W.; Rey, FA; DiMaio, F.; Bosch, BJ; Veesler, D. Glycan-schild en epitoopmaskering van een coronavirus-spike-eiwit waargenomen door cryo-elektronenmicroscopie. Nat. Structuur. Mol. Biol. 2016, 23, 899-905. [Kruisref] [PubMed]
7. Wang, Y.; Wang, L.; Cao, H.; Liu, C. SARS-CoV-2 S1 is superieur aan de RBD als een COVID-19 subeenheid-vaccinantigeen. J. Med. Virol. 2021, 93, 892–898. [Kruisref]
8. Theoharides, TC; Conti, P. Houd rekening met SARS-CoV-2-spike-eiwit: er is meer dan op het eerste gezicht lijkt. J. Biol. Regel. Homeost. Agenten 2021, 35, 833–838. [Kruisref] [PubMed]
9. Guo, X.; Deng, Y.; Chen, H.; Lan, J.; Wang, W.; Zou, X.; Hung, T.; Lu, Z.; Tan, W. Systemische en mucosale immuniteit bij muizen opgewekt door een enkele immunisatie met op vectoren gebaseerde vaccins van het menselijke adenovirus type 5 of 41 die het spike-eiwit van het coronavirus van het ademhalingssyndroom in het Midden-Oosten dragen. Immunologie 2015, 145, 476–484. [Kruisref] [PubMed]
10. Gao, J.; Mese, K.; Bunz, O.; Ehrhardt, A. State-of-the-art menselijke adenovirusvectorologie voor therapeutische benaderingen. FEBS Lett. 2019, 593, 3609–3622. [Kruisref]
11. Xing, K.; Tu, XY; Liu, M.; Liang, ZW; Chen, JN; Li, JJ; Jiang, LG; Xing, FQ; Jiang, Y. Werkzaamheid en veiligheid van COVID-19-vaccins: een systematische review. Zhongguo Dang Dai Er Ke Za Zhi 2021, 23, 221–228. [Kruisref]
12. Voysey, M.; Clemens, SAC; Madhi, SA; Weckx, LY; Folegatti, PM; Aley, PK; Angus, B.; Baillie, VL; Barnabas, SL; Bhorat, QE; et al. Veiligheid en werkzaamheid van het ChAdOx1 nCoV-19-vaccin (AZD1222) tegen SARS-CoV-2: een tussentijdse analyse van vier gerandomiseerde gecontroleerde onderzoeken in Brazilië, Zuid-Afrika en het VK. Lancet 2021, 397, 99–111. [Kruisref] [PubMed]
13. Li, C.; Guo, Y.; Fang, Z.; Zhang, H.; Zhang, Y.; Chen, K. Analyse van de beschermende werkzaamheid van goedgekeurde COVID-19-vaccins tegen verschillende mutanten. Voorkant. Immunol. 13, 2022, 804945. [Kruisref] [PubMed]
14. Tanriover, MD; Doe ˘ganay, HL; Akova, M.; Güner, HR; Azap, A.; Akhan, S.; Köse, ¸S.; Erdinç, F.; Akalin, EH; Tabak, Ö.F.; et al. Werkzaamheid en veiligheid van een geïnactiveerd SARS-CoV-2-vaccin met volledig virion (CoronaVac): tussentijdse resultaten van een dubbelblinde, gerandomiseerde, placebo-gecontroleerde fase 3-studie in Turkije. Lancet 2021, 398, 213–222. [Kruisref]
15. Xia, S.; Zhang, Y.; Wang, Y.; Wang, H.; Yang, Y.; Gao, GF; Tan, W.; Wu, G.; Xu, M.; Lou, Z. Veiligheid en immunogeniciteit van een geïnactiveerd SARS-CoV-2-vaccin, BBIBP-CorV: een gerandomiseerde, dubbelblinde, placebogecontroleerde fase 1/2-studie. Lancet-infectie. Dis. 21, 39–51 2021. [Kruisref] [PubMed]
16. Yang, S.; Li, Y.; Dai, L.; Wang, J.; Hij, P.; Li, C.; Hoektand, X.; Wang, C.; Zhao, X.; Huang, E.; et al. Veiligheid en immunogeniciteit van een recombinant tandem-herhaald dimeer RBD-gebaseerd eiwitsubeenheidvaccin (ZF2001) tegen COVID-19 bij volwassenen: twee gerandomiseerde, dubbelblinde, placebogecontroleerde fase 1- en 2-onderzoeken. Lancet-infectie. Dis. 21, 2021, 1107–1119. [Kruisref]
17. Mallapaty, het DNA-COVID-vaccin van S. India is een wereldprimeur en er komen er nog meer. Natuur 2021, 597, 161–162. [Kruisref]
18. Grifoni, A.; Weiskopf, D.; Ramirez, SI; Mateus, J.; Dan, JM; Moderbacher, CR; Rawlings, SA; Sutherland, A.; Premkumar, L.; Jadi, RS; et al. Doelwitten van T-celreacties op SARS-CoV-2 coronavirus bij mensen met de ziekte van COVID-19 en niet-blootgestelde personen. Cel 2020, 181, 1489–1501.e1415. [Kruisref]
19. Cao, Y.; Su, B.; Guo, X.; Zon, W.; Deng, Y.; Bao, L.; Zhu, Q.; Zhang, X.; Zheng, Y.; Geng, C.; et al. Krachtige neutraliserende antilichamen tegen SARS-CoV-2 geïdentificeerd door high-throughput single-cell sequencing van de B-cellen van herstellende patiënten. Cel 2020, 182, 73–84.e16. [Kruisref]
20. Amanat, F.; Krammer, F. SARS-CoV-2 Vaccins: statusrapport. Immuniteit 2020, 52, 583–589. [Kruisref]
21. Li, Y.; Bi, Y.; Xiao, H.; Yao, Y.; Liu, X.; Hu, Z.; Duan, J.; Yang, Y.; Li, Z.; Li, Y.; et al. Een nieuwe DNA- en eiwitcombinatie van het COVID-19-vaccin biedt volledige bescherming tegen SARS-CoV-2 bij resusapen. Opduiken. Microben infecteren. 2021, 10, 342–355. [Kruisref]
22. Du, L.; Hoi.; Zhou, Y.; Liu, S.; Zheng, BJ; Jiang, S. Het piekeiwit van SARS-CoV – een doelwit voor vaccin- en therapeutische ontwikkeling. Nat. Rev. Microbiol. 2009, 7, 226–236. [Kruisref] [PubMed]
23. Yue, L.; Cao, H.; Xie, T.; Lang, R.; Li, H.; Yang, T.; Yan, M.; Xie, Z. N-terminaal afgeknot nucleocapside-eiwit van SARS-CoV-2 als een betere serologische marker dan geheel nucleocapside-eiwit bij het evalueren van de immunogeniciteit van geïnactiveerd SARS-CoV-2. J. Med. Virol. 2021, 93, 1732–1738. [Kruisref] [PubMed]
24. Greaney, AJ; Loes, AN; Heren, LE; Crawford, KHD; Starr, TN; Malone, KD; Chu, HY; Bloom, JD Het SARS-CoV-2 mRNA-1273-vaccin lokt meer RBD-gerichte neutralisatie uit, maar met bredere antilichaambinding binnen de RBD. bioRxiv 2021. [Kruisref]
25. Mantus, G.; Nyhoff, LE; Kauffman, RC; Edara, VV; Lai, L.; Floyd, K.; Shi, PY; Menacherij, VD; Edupuganti, S.; Scherer, EM; et al. Evaluatie van cellulaire en serologische reacties op acute SARS-CoV-2-infectie toont het functionele belang aan van het receptorbindende domein. J. Immunol. 2021, 206, 2605–2613. [Kruisref]
26. Hij, Y.; Zhou, Y.; Liu, S.; Kou, Z.; Li, W.; Farzan, M.; Jiang, S. Receptorbindend domein van SARS-CoV-spike-eiwit induceert zeer krachtige neutraliserende antilichamen: implicatie voor de ontwikkeling van een subeenheidvaccin. Biochem. Biofysiek. Res. Gemeenschappelijk. 2004, 324, 773-781. [Kruisref]
27. Deng, S.; Liang, H.; Chen, P.; Li, Y.; Li, Z.; Fan, S.; Wu, K.; Li, X.; Chen, W.; Qin, Y.; et al. Ontwikkeling en toepassing van virale vectorvaccins tijdens de COVID-19 pandemie. Micro-organismen 2022, 10, 1450. [Kruisref]
28. Zhu, FC; Guan, XH; Li, YH; Huang, JY; Jiang, T.; Hou, LH; Li, JX; Yang, BF; Wang, L.; Wang, WJ; et al. Immunogeniciteit en veiligheid van een recombinant adenovirustype-5-vectored COVID-19-vaccin bij gezonde volwassenen van 18 jaar of ouder: een gerandomiseerde, dubbelblinde, placebogecontroleerde fase 2-studie. Lancet 2020, 396, 479–488. [Kruisref]
29. Li, M.; Guo, J.; Lu, S.; Zhou, R.; Shi, H.; Shi, X.; Cheng, L.; Liang, Q.; Liu, H.; Wang, P.; et al. Een enkele dosis immunisatie met een vaccin op basis van het adenovirus van de chimpansee induceert een duurzame en beschermende immuniteit tegen SARS-CoV-2-infectie. Voorkant. Immunol. 12, 2021, 697074. [Kruisref]
30. Guo, J.; Mondal, M.; Zhou, D. Ontwikkeling van nieuwe vaccinvectoren: adenovirale vectoren van chimpansees. Brommen. Vaccins Immunother. 2018, 14, 1679–1685. [Kruisref]
31. Kaneko, N.; Kuo, HH; Boucau, J.; Boer, JR; Allard-Chamard, H.; Mahajan, VS; Piechocka-Trocha, A.; Lefteri, K.; Osborn, M.; Bals, J.; et al. Verlies van Bcl-6-Expressie van T-folliculaire helpercellen en kiemcentra bij COVID-19. Cel 2020, 183, 143–157.e113. [Kruisref] [PubMed]
32. Lexberg, MH; Taubner, A.; Albrecht, ik; Lepenies, ik.; Richter, A.; Kamradt, T.; Radbruch, A.; Chang, HD IFN- en IL-12 werken samen om in vivo gegenereerde Th17 om te zetten in Th1/Th17-cellen. EUR. J. Immunol. 2010, 40, 3017-3027. [Kruisref] [PubMed]
33. Liu, J.; Xu, K.; Xing, M.; Zhuo, Y.; Guo, J.; Du, M.; Wang, Q.; Elk.; Li, J.; Gao, P.; et al. Heterologe prime-boost-immunisaties met adenovirale vectoren van chimpansees wekken krachtige en beschermende immuniteit op tegen SARS-CoV-2-infectie. Cel ontdekken. 7, 123 2021. [Kruisref] [PubMed]