HDAC1-gemedieerde regulatie van GABA-signalering binnen het laterale septum vergemakkelijkt het langdurig uitsterven van sociale angst bij mannelijke muizen
Aug 10, 2023
Sociale angststoornis (SAD) wordt veroorzaakt door traumatische sociale ervaringen. Het wordt gekenmerkt door intense angst en het vermijden van sociale contexten, wat krachtig kan worden nagebootst door het paradigma van sociale angstconditionering (SFC). De uitdovingsfase van het SFC-paradigma lijkt op exposure-therapie voor SAD en vereist het leren loskoppelen van het trauma van de sociale context. Door leren geïnduceerde acetylering van histonen is van cruciaal belang voor de vorming van uitdovingsgeheugen en het uithoudingsvermogen ervan. Hoewel klasse I histondeacetylasen (HDAC's) het bovengenoemde leerproces reguleren, bestaat er een gebrek aan duidelijkheid in isovormen en ruimtelijke specificiteit in de HDAC-functie bij sociaal leren. Gebruikmakend van het SFC-paradigma hebben we de rol van HDAC1 functioneel gekarakteriseerd, met name in het laterale septum (LS), bij het reguleren van de vorming van langetermijngeheugen voor het uitsterven van sociale angst.
Inductie is erg belangrijk bij het leren. Een passende introductie kan ervoor zorgen dat leerlingen kennis bewuster accepteren en de leerinhoud dieper begrijpen en onthouden. Dit komt omdat het geheugen van mensen een soort mentale activiteit is en een manifestatie van intelligentie. Inductie is een positieve en creatieve cognitieve activiteit die het denken en de verbeelding van mensen tijdens het cognitieve proces kan stimuleren en begeleiden, waardoor het geheugen wordt verbeterd.
Inductie kan op verschillende manieren worden bereikt. Docenten kunnen bijvoorbeeld problemen stellen tijdens colleges en studenten zelf over oplossingen laten nadenken, waardoor studenten hun vermogen om problemen en geheugen uitgebreid te analyseren kunnen verbeteren. Bovendien kunnen leraren ook rijke leermiddelen gebruiken, zoals afbeeldingen, audio, video en andere manieren om de absorptie en het geheugen van kennis door studenten te bevorderen.
Hierdoor is er een nauwe relatie tussen inductie en geheugen. Door middel van passende inductie kunnen leerlingen de kennis dieper begrijpen en de leerinhoud beter beheersen. Dit diepgaande begrip zal leerlingen helpen kennis voor een langere periode vast te houden en de flexibele toepassing van wat ze geleerd hebben in het latere leren en in de praktijk vergemakkelijken.
Kortom, inductie en geheugen zijn onlosmakelijk met elkaar verbonden. We moeten een geschikte leermethode en introductiemethode vinden door voortdurend te onderzoeken en te oefenen, en ons geheugen en leerniveau voortdurend te verbeteren. Alleen op deze manier kunnen we onze talenten in het toekomstige leven ten volle benutten. Het is duidelijk dat we ons geheugen moeten verbeteren. Cistanche kan het geheugen verbeteren omdat Cistanche een traditioneel Chinees medicinaal materiaal is met veel unieke effecten, waaronder het verbeteren van het geheugen. De werkzaamheid van gehakt komt voort uit een verscheidenheid aan actieve ingrediënten die het bevat, waaronder carbonzuur, polysachariden, flavonoïden, enz. Deze ingrediënten kunnen via verschillende kanalen de gezondheid van de hersenen bevorderen.

Klik op supplementen kennen om het geheugen te vergroten
We maten een lokale toename in activiteit-inducerende HDAC1-fosforylering bij serineresiduen van sociale angst-geconditioneerde en d (SFC +) muizen als reactie op het uitsterven van sociale angst. We ontdekten ook dat de functie van LS-HDAC1 negatief correleert met het leren van acute sociale angstuitdoving met behulp van farmacologische en virale benaderingen. Verder versterkte remming van LS-HDAC1 de expressie van de GABA-A-receptor 1-subeenheid (Gabrb1) in SFC+ muizen, en activatie van GABA-A-receptoren vergemakkelijkte het leren van acuut uitsterven. Ten slotte leidde het faciliteren van het leren van uitdoving door HDAC1-remming of GABA-A-receptoractivering binnen de LS tot de vorming van een langdurig uitdovingsgeheugen, dat zelfs 30 dagen na het uitsterven aanhield. Onze resultaten laten zien dat HDAC1-gemedieerde regulatie van GABA-signalering in de LS cruciaal is voor de vorming van een geheugen dat sociale angst uitdooft.
INVOERING
Sociale angststoornis (SAD), veroorzaakt door aversieve sociale ervaringen, wordt gekenmerkt door intense angst en vermijding van sociale situaties [1, 2]. De behandeling van SAD bestaat uit op blootstelling gebaseerde cognitieve gedragstherapie (CGT), die een ‘veiligheidsgeheugen’ creëert dat naast het oorspronkelijke aversieve geheugen bestaat [3, 4]. Omdat dezelfde cue zowel aversieve als veiligheidsherinneringen kan activeren, concurreren ze wanneer ze worden opgeroepen door relevante stimuli, en bepaalt het dominante geheugenspoor de gedragsmatige uitkomst. Het is bekend dat het veiligheidsgeheugen dat wordt gecreëerd door op blootstelling gebaseerde CGT in de loop van de tijd afneemt, wat leidt tot een terugval van eerder uitgedoofde angstreacties bij SAD-patiënten [5-7]. Het is dus absoluut noodzakelijk om de mechanismen te begrijpen die ten grondslag liggen aan het blijvende uitdovingsgeheugen om therapeutische strategieën te ontwikkelen die leiden tot een completere en robuustere remissie van SAD.
Daartoe hebben we het operante sociale angstconditioneringsparadigma (SFC) vastgesteld, dat robuuste angst en vermijding van soortgenoten bij muizen genereert [8]. In dit paradigma worden het uitsterven van sociale angst en de vorming van een herinnering aan het uitsterven geïnduceerd door opeenvolgende presentaties van verschillende sociale stimuli (onbekende soortgenoten), wat resulteert in een geleidelijk verlies van angst en meer sociaal onderzoek [9]. Eerdere studies uit ons laboratorium hebben de betrokkenheid aangetoond van het laterale septum (LS) bij het uitsterven van door SFC geïnduceerde sociale angst bij muizen [10, 11]. Het is ook bekend dat de LS verschillende sociale gedragingen reguleert [12], die worden ondersteund door complexe epigenetische mechanismen [13]. De epigenetische mechanismen binnen de LS die het uitsterven van sociale angst en de vorming van een langetermijn-uitstervingsgeheugen reguleren, blijven echter onbekend.
Overeenkomend bewijs suggereert het belang van posttranslationele acetylering van N-terminale staarten van histonresiduen bij de consolidatie en instandhouding van angstgeheugen [14]. Klasse I histondeacetylasen (HDAC's), die de verwijdering van acetylgroepen uit deze N-terminale staarten van histonen katalyseren, zijn essentiële regulatoren van genexpressie die ten grondslag liggen aan leren en geheugen [15]. Deze klasse I HDAC's, waaronder HDAC1, HDAC2, HDAC3 en HDAC8, vertonen een opmerkelijke ruimtelijke en contextuele afhankelijkheid in hun functie.
Zo bleek bijvoorbeeld dat hippocampale HDAC1 het associatieve geheugen verbetert in een contextueel angstconditioneringsparadigma [16], terwijl hippocampale HDAC2 functioneel gekoppeld is aan stoornissen in de vorming van object- en ruimtelijk geheugen op lange termijn [17, 18]. Op dezelfde manier werd de HDAC1-activiteit opgereguleerd, terwijl de HDAC2-activiteit werd gedownreguleerd in respectievelijk de amygdala en de prefrontale cortex, na geconditioneerde angstconditionering [19]. Studies hebben ook de differentiële bijdrage van HDAC3 geïmpliceerd in de vorming van robuuste aversieve contextuele en gecue angstherinneringen in respectievelijk de hippocampus en de basale amygdala [20].
Gezien de gevarieerde en gecompliceerde functies van klasse I HDAC’s bij de regulatie van leren en geheugen, worden HDAC-remmers in verschillende preklinische onderzoeken vaak gebruikt als cognitieve versterkers [21]. De bijdrage van specifieke HDAC's aan het reguleren van het uithoudingsvermogen van het geheugen voor het uitsterven van sociale angst blijft echter ongrijpbaar.

Daarom onderzochten we in deze studie de regulering van klasse I HDAC's in de context van het SFC-paradigma. Gebaseerd op de toename na het uitsterven van activiteit-inducerende serinefosforylering van HDAC1, hebben we de LS-HDAC1-functie gemanipuleerd met behulp van farmacologische remming en virale overexpressie. Verder hebben we, in navolging van de toename in de expressie van het gen dat codeert voor de 1-subeenheid van de gamma-aminoboterzuur (GABA) A-receptor (Gabrb1) als reactie op de combinatie van HDAC1-blokkade en uitstervingstraining, de GABA-A-receptor geactiveerd signalering binnen de LS. Ten slotte hebben we getest op het effect van LS-HDAC1-remming en LSGABA-A-receptoractivering op de vorming van uitdovingsgeheugen op de lange termijn. Onze resultaten geven aan dat LS-HDAC1 het leren van het uitsterven van sociale angst en het leren van het uitsterven van sociale angst op de lange termijn negatief reguleert via GABA-A-signalering.
MATERIALEN EN METHODES
Dieren
Mannelijke CD1-muizen (Charles River, Duitsland, 8-11 weken oud aan het begin van de experimenten) werden in groepshuisvesting gehouden onder standaard laboratoriumomstandigheden (12/12 uur licht / donker-cyclus, licht aan om 06:00, 22 graden, 60% luchtvochtigheid, voedsel en water ad libitum) in kooien van polycarbonaat (16 x 22 x 14 cm) tot de operatie of 3 dagen vóór elk gedragsexperiment. Op leeftijd en gewicht afgestemde mannelijke CD1-muizen werden gebruikt als sociale stimuli in het SFC-paradigma. Alle experimentele procedures werden uitgevoerd tussen 08:00 en 12:00 uur door de Gids voor de verzorging en het gebruik van proefdieren van de regering van Unterfranken, de ARRIVE-richtlijnen [22] en de richtlijnen van de NIH.
SFC-paradigma
SFC werd uitgevoerd zoals eerder beschreven [8] met kleine aanpassingen voor het analyseren van uitsterving op lange termijn:
Acquisitie van sociale angst (dag 1). Muizen werden in de angstconditioneringskamer geplaatst en kregen de gelegenheid om gedurende 30 s te wennen voordat ze gedurende 3 minuten werden blootgesteld aan een lege gaaskooi waarin ze het object vrijelijk konden onderzoeken. Vervolgens werd de lege kooi vervangen door een identieke kooi met soortgenoten die qua leeftijd en gewicht overeenkwamen (geconditioneerde stimulus: CS). Geconditioneerde muizen (SFC+) kregen elke keer dat ze de soortgenoot onderzochten een milde voetschok (ongeconditioneerde stimulus: US; 0,7 mA, 1 s). Ongeconditioneerde muizen (SFC-) mochten gedurende 3 minuten vrijelijk interacteren met de soortgenoten. Meestal vermeden SFC+ muizen het benaderen van of interactie hebben met de soortgenoten na 1-3 CS-US-koppelingen, op welk punt werd aangenomen dat ze sociale angst hadden verworven en terugkeerden naar hun thuiskooi.
Uitroeiing van sociale angst (dag 2). Het uitsterven van sociale angst werd op identieke wijze uitgevoerd in de thuiskooi van SFC+ en SFC− muizen. Elke muis met één huis werd driemaal gedurende 3 minuten blootgesteld aan een lege kooi van draadgaas en vervolgens aan zes soortgenoten van verschillende leeftijd en gewicht, elk gedurende 3 minuten, met een interstimulusinterval van 3- minuten. De tijd besteed aan het onderzoeken van de sociale stimulus werd gemeten als een indicator van sociale angst.
Herinnering aan sociale angst (dag 3, dag 32). Voor het op korte termijn uitdoven van sociale angst werden muizen in hun kooi gedurende 3 minuten blootgesteld aan zes verschillende sociale stimuli met een interstimulus-interval van 3- minuten. Voor de herinnering aan het uitsterven van sociale angst op de lange termijn werden muizen 30 dagen na het uitsterven van de sociale angst in hun thuiskooi getest. De op leeftijd afgestemde leeftijd werd twee keer blootgesteld aan verschillende sociale stimuli gedurende elk 3 minuten met een interstimulus-interval van 3- minuten.
Stereotactische implantaties
Gids cannulbygth; Injecta GmbH) voor bilaterale geneesmiddelinfusie in de LS werden stereotaxisch geïmplanteerd waarbij de punt 2 mm boven het LS-doelgebied rustte (van bregma: anterieur-posterieur: −0.3 mm, mediolateraal: ±0 0,5 mm, dorsoventraal: −1,6 mm [23]), onder isofluraananesthesie (Forene, Abbott GmbH) [10, 24]. Alle muizen kregen een subcutane injectie van antibiotica (10 mg/kg Baytril, Bayer GmbH) en analgetica (0,05 mg/kg buprenorfine, Bayer) om postoperatieve infecties en pijn te voorkomen. Om de postoperatieve stress te verminderen, werden alle muizen gedurende ten minste vijf dagen eenmaal per dag gehanteerd voordat experimenten werden uitgevoerd waarbij dummycanules die de geleidecanules afsloten, werden gedesinfecteerd.

Intraseptale medicijninfusies
Muizen kregen bilaterale infusies van MS275 (een ortho-aminoconspecifieke remmer van kleine moleculen met hoge affiniteit voor HDAC1; 375 ng/0,2 µl/hemisfeer) [16, 25], muscimol (Muc; een selectieve GABA-A receptoragonist; 0,2 µg/0,2 µl/hemisfeer) [26, 27] of vehiculum (Veh; 0,2 µl/hemisfeer; 0. 5% DMSO in steriele Ringer) in de LS via een infuuscanule van 27 G, ingebracht in de geleidecanules aangesloten op een Hamilton-spuit van 10-μl. Infusie van MS275 en Muc werd respectievelijk 120 minuten of 10 minuten voorafgaand aan de SFC-extinctietraining uitgevoerd. Alleen dieren met correcte, histologisch geverifieerde infusieplaatsen werden opgenomen in de statistische analyses.
Intraseptale virale infusies
Het Adeno-geassocieerde virus (AAV; Vector Biolabs) voor overexpressie van HDAC1, dwz AAV-hSyn-HDAC1-GFP-WPRE (HDAC1-OE; 2,5 × 10¹³ GC /ml;), of de controlevector, dwz AAV-hSyn-GFP-WPRE (GFP; 2,5 x 10¹³ GC/ml), werden bilateraal geïnfuseerd in de LS (anterieur-posterior van bregma +0.3 mm , lateraal ±0,5 mm; dorsoventraal −3,8 mm, −3,4 mm, −3,1 mm, −2,8 mm) met vier 70-nl infusies/halfrond. Infusies werden uitgevoerd, 3 weken lang werden blootgesteld aan de start van gedragsexperimenten zoals eerder beschreven [11].
Analyse van genexpressie
Muizen werden onderworpen aan het uitsterven van sociale angst en werden na gedragstraining gedurende 90 minuten ongestoord in hun kooien gelaten. Muizen werden vervolgens opgeofferd onder CO2-anesthesie, hun hersenen werden snel verwijderd en anterieur-posterieur-posterieur van bregma 0.1 mm tot −0.10 mm) werd ontleed.
RNA-isolatie en PCR-array
Eiwitextractie en analyse
Nucleaire eiwitten werden geëxtraheerd met behulp van de EpiQuick Nuclear Extraction Kit (Epigentek) volgens het protocol van de fabrikant. Western-blot-analyse werd gebruikt om HDAC1-expressie-Torylation-niveaus te detecteren. 15 µg eiwit werd opgelost op 12% TGX vlekvrije gels (Bio-Rad) en overgebracht naar nitrocellulosemembranen. Membranen werden geblokkeerd met 5% melk, 1% Tween-20 in Tris-gebufferde zoutoplossing gevolgd door incubatie gedurende de nacht met het volgende op antibanilide gebaseerde anti-HDAC1 (Thermo Fisher; PA1-860; 1:2000) , HDAC1-fosforylering op serineresidu 421 (konijn-anti-pHDAC1 (S421); Thermo Fisher; PA5-36810; 1:2000), evenals fosforylering op serine 421 en 423 (konijn-anti-pHDAC1 (S421, S423), Thermo Fisher; PA5-36911; 1:2000). Immunogemerkte banden werden gedetecteerd met behulp van het HRP-geconjugeerde geit-anti-konijn-antilichaam (Cell Signaling; #7074; 1:1000) na een verbeterd chemilbeforence-systeem (SuperSignal West Dura, Thermo Fisher). Totaal eiwit werd gebruikt als interne beladingscontrole.
Scoren van gedrag en statistische analyse
De tijden voor sociaal onderzoek als indicator van sociale angst werden handmatig gescoord door een waarnemer die blind was voor behandeling met behulp van JWatcher (1.0, Macquarie University en UCLA). GraphPad Prism versie 9.0 voor Windows (GraphPad Software) werd gebruikt voor statistische analyse. Een gedetailleerd rapport van anterieur-posterieure analyses is beschikbaar in aanvullende tabel S2. Alle figuren zijn geproduceerd met behulp van het Affinity-ontwerp.
RESULTATEN
Het uitsterven van sociale angst reguleert activiteit-inducine vóór fosforylaties in het septum van SFC+ muizen. Eerst analyseerden we HDAC1-eiwitniveaus in septumweefselmonsters verkregen van SFC+ en SFC− muizen 90 minuten na blootstelling aan slechts één sociale stimulus, dat wil zeggen met verkorte uitsterving (SFC+/1ss en SFC−/1ss), of zes sociale stimuli, dat wil zeggen met volledige uitsterving (posterior-posterior6ss) (Fig. 1A). Het aantal CS-US-koppelingen tijdens het verwerven van sociale angst op dag 1 (Fig. 1B) was vergelijkbaar tussen beide groepen SFC + muizen. Zoals verwacht besteedden SFC+ muizen significant minder tijd aan het onderzoeken van de eerste (of volgende) sociale stimuli vergeleken met SFC− muizen (P <0,05; Fig. 1C), wat wijst op hogere niveaus van sociale angst. Tegen het einde van het volledige uitstervingsprotocol was de onderzoekstijd van de 6e sociale stimulus door SFC+/6ss muizen echter vergelijkbaar met die van hun SFC−/6ss tegenhangers (figuur 1C), wat duidt op een succesvolle uitdoving van sociale angst.

Western blot-analyse onthulde geen verschillen in septale HDAC1-niveaus tussen de vier geteste groepen, dat wil zeggen tussen SFC+/1ss, SFC+/6ss, SFC−/1ss en SFC−/6ss, tijdens het uitsterven van sociale angst (Fig. 1D). Het is bekend dat post-translationele fosforylering van HDAC1 op ser421 (pHDAC1) en dubbele fosforylering op ser421 en ser423 (ppHDAC1) de deacetylase-activiteit van HDAC1 verhogen [28]. Daarom hebben we de pHDAC1- en ppHDAC1-niveaus binnen het septum gekwantificeerd om de activering van HDAC1 tijdens het uitsterven van sociale angst te beoordelen. Zowel de pHDAC1- als de ppHDAC1-niveaus waren verhoogd in SFC+/6ss vergeleken met SFC+/1ss-muizen (Fig. 1E; P < 0.05 voor pHDAC1 en Fig. 1F; P < 0,05 voor ppHDAC1), wat duidt op een toename van de HDAC1-activiteit tijdens het uitsterven van sociale angst.

Bidirectionele modulatie van LS-HDAC1 reguleert het leren van het uitsterven van sociale angst
Vervolgens probeerden we een causaal verband vast te stellen tussen de LSHDAC1-functie en het uitsterven van sociale angst door bidirectionele modulatie van de LS-HDAC1-functie met behulp van farmacologische blokkade (verlies van functie) of een AAV-gemedieerde overexpressie (winst van functie) in twee afzonderlijke cohorten muizen. .
Voor farmacologische blokkade van microstoten werd S275 of Veh bilateraal in de LS geïnjecteerd voorafgaand aan de uitdovingstraining, wat leidde tot de volgende groepen: SFC+/Veh, SFC+/MS275, SFC−/Veh en SFC−/MS275 (Fig. 2A). Het aantal CS-US-paren verschilde niet tussen SFC + -groepen tijdens het verwerven van sociale angst (Fig. 2B). Tijdens het uitsterven van sociale angst op dag 2 vertoonden alle SFC+ muizen hoge niveaus van sociale angst tijdens de presentatie van de eerste sociale stimulus, onafhankelijk van hun behandeling, zoals weerspiegeld door de lage sociale onderzoekstijden. HDAC1-remming versnelde echter het uitsterven, omdat de SFC+/MS275-groep al een verhoogd sociaal onderzoek vertoonde tijdens blootstelling aan de tweede en derde sociale stimulus (P < 0.05 vs. SFC+/Veh; figuur 2C). Behandeling met MS275 had geen invloed op de sociale onderzoekstijden bij SFC-muizen (Fig. 2C, D). Alle groepen vertoonden een vergelijkbaar hoog niveau van sociaal onderzoek tijdens kortetermijnherinneringen (Fig. 2D), wat wijst op het succesvolle uitsterven van sociale angst.
Ten tweede hebben we een gain-of-function-experiment uitgevoerd met behulp van AAV-gemedieerde overexpressie van HDAC1 (AAV-hSyn-HDAC1-GFPWPRE; HDAC1-OE) of een controlevirus (AAV-hSyn-GFP- WPRE; GFP) binnen het septum van SFC+ en SFC− muizen leidend tot de volgende groepen: SFC+/GFP, SFC+/HDAC-OE, SFC−/GFP en SFC−/HDAC-OE (Fig. 2E). Alle groepen SFC + muizen ontvingen hetzelfde aantal CSUS-paren tijdens acquisitie drie weken na virale transfectie (Fig. 2F), wat suggereert dat overexpressie van LS-HDAC1 het leren van sociale angst niet veranderde. Alle SFC+ muizen, onafhankelijk van de behandeling, vertoonden hoge niveaus van sociale angst tijdens de presentatie van de eerste sociale stimulus, zoals weerspiegeld door verminderd sociaal onderzoek vergeleken met de respectieve SFC−groepen (Fig. 2G). Het uitsterven van sociale angst werd echter aanzienlijk belemmerd door overexpressie van LS-HDAC1, omdat de SFC+/HDAC1-OE-groep minder sociaal onderzoek vertoonde tijdens blootstelling aan de tweede tot en met zesde sociale stimulus, in tegenstelling tot de SFC+/GFP-muizen die de verwachte uitsterven (P < 0.05 vs. SFC+/GFP; Fig. 2G). Vóór muizen had overexpressie van LS-HDAC1 geen invloed op de sociale onderzoekstijden (Fig. 2G, H). Tijdens de kortetermijnherinnering vertoonden alle groepen muizen vergelijkbare niveaus van sociaal onderzoek (Fig. 2H). Overexpressie van HDAC1 werd bevestigd door Western-blot-analyse (aanvullende figuur S1).
Pre-extinctieremming van LS-HDAC1 leidt tot dynamische veranderingen in genexpressie
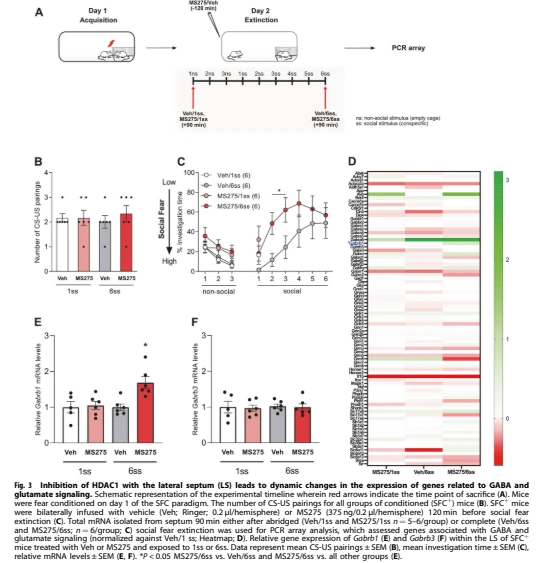
Om de mogelijke stroomafwaartse doelwitten van LS-HDAC1 te identificeren, werden SFC+ muizen bilateraal geïnfuseerd met Veh of met MS275 120 min vóór het uitsterven van de sociale angst en werden ze 90 min na blootstelling aan de eerste (Veh /1ss en MS275/1ss) of de zesde (Veh/6ss en MS275/6ss) sociale stimulus (figuur 3A). Micropunches van septumweefsel werden verkregen en verwerkt met behulp van een PCR-array voor GABA- en glutamaatsignalering (zie "Materialen en methoden"). Alle SFC+-groepen ontvingen een vergelijkbaar aantal CS-US-koppelingen tijdens het verwerven van sociale angst (Fig. 3B). Tijdens het uitsterven vertoonden alle groepen SFC+ muizen weinig sociaal onderzoek tijdens blootstelling aan de eerste sociale stimulus. Tijdens het uitsterven vertoonden SFC + -muizen die werden opgeofferd na de zesde sociale stimulus echter incrementeel sociaal contact, waarbij elke blootstelling suggereerde dat er sprake was van een juiste uitdoving van sociale angst (Fig. 3C). Ter bevestiging van de resultaten in figuur 2C werd het uitsterven van sociale angst versneld in MS275/6ss vergeleken met Veh/6ss-muizen, zoals blijkt uit hogere sociale onderzoekstijden tijdens de presentatie aan de 2e en 3e sociale stimulus (P < 0. 05 versus Veh/6ss, figuur 3C). PCR-arrayanalyse voor GABA- en glutamaatsignaleringsgerelateerde genen onthulde dynamische veranderingen in veel genen, zoals weergegeven in de heatmap (Fig. 3D). De volledige PCR-array-generalist samen met de respectieve vouwverandering en P-waarden vindt u in aanvullende tabel S3. Eén gen dat echter expliciet werd opgereguleerd in met MS behandelde muizen na volledige uitstervingstraining was Gabrb1 (P <0,05 versus alle andere groepen; Fig. 3E), terwijl het nauw verwante Gabrb3-gen onveranderd bleef (Fig. 3F ).
Farmacologische activering van LS-GABA-A-receptoren vergemakkelijkt het leren van uitsterven
Gebaseerd op de resultaten van door HDAC{{0}} door HDAC-remming geïnduceerde post-extinctie verhoging van de Gabrb1-expressie, veronderstelden we dat GABAergische signalering ten grondslag zou kunnen liggen aan het uitdovingsversnellende effect van LSHDAC-remming. Om dit idee te testen, hebben we lokaal de LSGABA-A-signalering geactiveerd door Muc, een specifieke GABA-A-agonist [25], of Veh, te infuseren, wat leidde tot de volgende groepen: SFC+/Veh en SFC+/Muc, SFC−/Veh, en SFC-/Muc (Fig. 4A). SFC + muizen doordrenkt met Muc of Veh hadden hetzelfde aantal CS-US-koppelingen nodig om sociale angst te verwerven (Fig. 4B). Tijdens het uitsterven van de angst besteedden alle SFC+ muizen aanzienlijke micro-punches aan het onderzoeken van de sociale stimulus tijdens blootstelling aan de eerste sociale stimulus dan hun SFC− tegenhangers (P <0.05 vs. SFC−/Veh en SFC−/Muc; Fig. 4C), wat wees op een succesvolle verwerving van sociale angst. SFC+/Muc-muizen vertoonden echter een snellere uitsterving. Concreet lieten ze sociale onderzoeksniveaus zien die vergelijkbaar waren met die van de SFC− muizen, die al significant hoger waren dan die van SFC+/Veh muizen terwijl ze werden blootgesteld aan de tweede sociale stimulus (P <0,05 vs. SFC+/Veh: Fig. 4C). . Tijdens de kortetermijnherinnering vertoonden alle groepen muizen vergelijkbaar sociaal onderzoek (Fig. 4D), wat duidt op een succesvolle uitsterving.
Farmacologische remming van LS-HDAC1 of de activering van LS-GABA-signalering leidt tot het blijvend uitsterven van sociale angst
Gebaseerd op het verbeterde uitdovingsleren dat we hebben waargenomen zowel na LS-HDAC1-remming als LS-GABA-signaleringsactivering, hebben we vervolgens de blijvende aard van deze farmacologische mgeneralisties bestudeerd (Fig. 5A).
In het eerste experiment testten we het effect van HDAC1-blokkade op de vorming van blijvend uitdovingsgeheugen bij SFC+/Veh- en SFC+/MS275-muizen. Zowel Veh- als MS275--geïnfuseerde SFC+-muizen ontvingen hetzelfde aantal CS-US-koppelingen tijdens het verwerven van sociale angst (Fig. 5B). Ter bevestiging van onze eerdere waarnemingen (Fig. 2C en 3C), vertoonden SFC+ muizen geïnfuseerd met MS275 toegenomen sociaal onderzoek tijdens blootstelling aan de tweede en derde sociale stimulus tijdens training voor het uitsterven van sociale angst (P < 0.05 versus SFC+/Veh, figuur 5C). Bijgevolg vertoonden beide groepen vergelijkbare niveaus van sociale onderzoekstijden tijdens blootstelling aan de zesde sociale stimulus, wat duidt op een succesvolle uitsterving. Ondanks succesvolle uitsterving vertoonden SFC+/MS275-muizen tijdens langetermijnherinnering, uitgevoerd 30 dagen na uitstervingstraining, significant hogere niveaus van sociaal onderzoek (P <0,05 vs. SFC+/Veh; Fig. 5D), wat een verbeterd langdurig uitstervingsgeheugen aantoont na HDAC1-remming.
Hetzelfde experiment werd uitgevoerd in een afzonderlijke set SFC+-muizen die lokaal waren geïnfuseerd met Muc of Veh (SFC+/Veh- en SFC+/Muc-groepen). Beide groepen ontvingen vergelijkbare CS-US-paren die gelijke acquisitie aangaven (Fig. 5E) en vertoonden een vergelijkbaar laag sociaal onderzoek tijdens blootstelling aan de eerste sociale stimulus tijdens uitstervingstraining (Fig. 5F). Echter, net als in het vorige experiment (Fig. 4C), had de SFC+/Muc-groep een versnelde uitdoving van sociale angst (P < 0.05 vs. SFC+/Veh; Fig. 5F). Interessant genoeg vertoonden SFC+/Muc-muizen tijdens de langetermijnherinnering op dag 32 meer sociaal onderzoek vergeleken met de SFC+/Veh-groep (P <0,05 vs. SFC+/Veh; Fig. 5G), wat suggereert dat LS-GABA-A-activering ook resulteert in een verbeterd langdurig uitstervingsgeheugen.
DISCUSSIE
Processen die de overgang van kortetermijn- naar langetermijngeheugen reguleren in de context van angstgerelateerd gedrag, met name van SAD, worden niet goed begrepen. In deze studie beschrijven we, met behulp van het SFC-paradigma gecombineerd met farmacologische en virale benaderingen, een nieuw epigenetisch mechanisme gemedieerd door HDAC1 binnen de LS dat het langdurige geheugen voor het uitsterven van sociale angst bij mannelijke muizen reguleert. Concreet hebben we (i) verhoogde activiteit-inducerende fosforylatie van HDAC1 in het septum van SFC+ muizen waargenomen tijdens het uitsterven van sociale angst, (ii) negatieve regulatie van sociale angstexpressie door HDAC1 binnen de LS, (iii) een verbeterde expressie van Gabrb1 in de septum als reactie op de combinatie van HDAC1-remming en -uitdoving, (iv) facilitering van het uitsterven van angst door activering van de GABA-A-receptor, en (iv) langdurige consolidatie van het uitdovingsgeheugen na farmacologische remming van HDAC1 of activering van GABA-A-receptoren binnen de LS .

Klasse I HDAC's zijn eerder in verband gebracht met tekorten in sociaal gedrag [29-31] en associatief leren [16, 17, 20, 32]. Gezien dit uitgangspunt hebben we de septale HDAC1-eiwitdynamiek getest tijdens het uitsterven van sociale angst en ontdekten we dat het uitsterven van sociale angst bij SFC + muizen de pHDAC1 en ppHDAC1 versterkte (Fig. 1E, F), hoewel de HDAC1-eiwitniveaus onveranderd bleven (Fig. 1D). Het is bekend dat caseïnekinase 2-gemedieerde post-translationele fosforylaties van HDAC1 op ser421 en ser423 de katalytische (dat wil zeggen deacetylase) activiteit en de associatie met grote repressorcomplexen, zoals Sin3A- en CoREST-complexen, verhogen [33]. Verhoogde fosforylering op deze locaties was het gevolg van het uitsterven van sociale angst, wat suggereert dat uitstervingstraining de HDAC1-activiteit alleen bij SFC + muizen verhoogt. Deze verbetering werd niet gezien bij SFC− muizen of SFC+ muizen die een verkorte uitsterving doormaakten, wat suggereert dat volledige uitstervingstraining bij sociaal angstige muizen essentieel is voor het verhogen van de HDAC1-fosforylering.
We hebben verder een causaal verband onthuld tussen de verhoogde HDAC1-activiteit binnen de LS en sociale angst. (i) Farmacologische blokkade van LS-HDAC1 120 minuten voordat de angst uitdoofde, vergemakkelijkte het uitsterven van sociale angst (Fig. 2C). (ii) Omgekeerd verminderde AAV-gemedieerde overexpressie van HDAC1 binnen de LS het uitsterven van sociale angst (Fig. 2G). Zoals eerder vermeld, zijn HDAC1 en andere klasse I HDAC's beschreven als kritische regulatoren van angstgeheugen [16]. Een verminderde HDAC3-bezetting bij de cFos-promotor in de dorsale hippocampus en basolaterale amygdala correleerde bijvoorbeeld met contextuele angstgeheugenvorming zonder de gecued angst te beïnvloeden [20]. In een ander onderzoek verbeterde RGFP963 – een kleine molecuulremmer van klasse I HDAC’s – de consolidatie van gesignaleerde angst [34]. Gezien het feit dat de LS cruciaal is voor het verwerken van sociale signalen tijdens de vorming van associatieve herinneringen [12], suggereren onze resultaten een nieuwe functie voor LS-HDAC1 als een negatieve regulator van het leren van het uitsterven van sociale angst.

Om stroomafwaartse doelwitten voor HDAC1 te onthullen, die het effect ervan op het leren van uitsterven zouden kunnen mediëren, hebben we een PCR-array uitgevoerd voor GABA- en glutamaatsignaleringsgerelateerde genen in SFC + muizen met of zonder HDAC1-remming. We vonden dat de Gabrb1-expressie verhoogd was in het septumweefsel van muizen die [37] ontvingen. Muc-gemedieerde activering van GABA-A-signalering met het CA1-gebied in de hippocampus verbetert het uitsterven van contextuele angst [38], terwijl soortgelijke manipulatie binnen de infralimbische prefrontale cortex of de basolaterale amygdala bevordert het uitdoven van angstgevoelens [39]. Studies hebben aangetoond dat de vermindering van de GABA-A-receptorfunctie als gevolg van de neerwaartse regulatie die een 1-expressie suggereert als gevolg van verminderde H3-promoteracetylering wordt gemedieerd door HDAC2 en HDAC3 onder omstandigheden van chronische blootstelling aan ethanol [40]. Een soortgelijk mechanisme zou ten grondslag kunnen liggen aan ons resultaat. HDAC1-remming resulteert dus mogelijk in verbeterde H3- en H4-acetylering en bijgevolg in verbeterde Gabrb1-expressie en GABA-signalering binnen de LS, wat leidt tot verbeterd uitdovingsleren in een sociale context. Ter bevestiging van deze hypothese vergemakkelijkte activatie vóór de LS-GABA-A-receptor met behulp van Muc het leren van uitdoving, vergelijkbaar met het waargenomen effect van LS-HDAC1-remming (Fig. 4C). De LS is voornamelijk GABAergisch en het is bekend dat het gemotiveerd gedrag reguleert [12]. Verder ontvangt de LS glutamatergische input van de CA2-regio's van de hippocampus, die coderen voor sociaal geheugen [41, 42]. Deze glutamaterge inputs hebben echter een gedefinieerde ruimtelijke organisatie en activeren een specifiek ensemble van neuronen binnen de LS [12, 43], wat leidt tot specifieke stroomafwaartse gedragseffecten. In de context van het uitsterven van sociale angst kunnen dergelijke inputs de negatieve waarde van de sociale stimulus bij SFC+ muizen communiceren, waardoor sociale vermijding en sociale angst ontstaan. Een algehele remming van de LS, veroorzaakt door verbeterde lokale GABAerge signalering, zal echter waarschijnlijk de sociale benadering van tociaal leren ontremmen.


Zoals eerder vermeld is het terugval en opnieuw optreden van SAD bij patiënten die volledige remissie hebben ondergaan zeer hoog [44-46]. Daarom hebben we getest op langdurig angstuitdovingsgeheugen na LS-HDAC1-remming of LS-GABA-A-activering. Met name verhoogden zowel HDAC1-remming als GABA-A-receptoractivering binnen de LS het uithoudingsvermogen van het uitsterven van sociale angst voldoende en voorkwamen ze de herhaling van aversieve sociale herinneringen zoals gevonden in met voertuig behandelde controles 30 dagen na het uitsterven van sociale angst (Fig. 5D, G) . Deze gegevens tonen aan dat het versnelde leunen dat acuut werd waargenomen door HDAC1-remming en GABA-A-receptoractivering leidde tot een substantiëlere consolidatie van het uitdovingsgeheugen, waardoor het zeer duurzaam werd. Dit bevestigt het idee dat HDAC-remmers effectieve cognitieve versterkers zijn [21, 47]. Het is bekend dat SAD vaker voorkomt bij vrouwen [48] en we hebben ook het SFC-paradigma vastgesteld bij vrouwelijke muizen [11]. Bovendien zijn er contrasterende effecten geweest van HDAC-remming op de cognitie bij vrouwelijke muizen, afhankelijk van het HDAC-subtype en de specifieke context die werd onderzocht [49, 50]. Je zou dus kunnen overwegen om het bovengenoemde mechanisme bij vrouwelijke muizen te bestuderen. Dit onderzoek valt echter buiten de reikwijdte en zou een interessant vervolgonderzoek moeten zijn.
Samenvattend biedt ons onderzoek kritische inzichten in de moleculaire mechanismen die betrokken zijn bij het reguleren van het uitsterven van sociale angst en impliceert dat de door HDAC1-gemedieerde remming van GABAerge signalering binnen de LS een negatieve regulator is van zowel het acute als het uitsterven van sociale angst op de lange termijn. muizen. Voor zover ons bekend is dit de eerste studie die HDAC1 causaal koppelt aan de regulatie van aversieve sociale herinneringen. Deze studie draagt bij aan de groeiende hoeveelheid bewijsmateriaal waarin HDAC's worden geplaatst als potentiële regulatoren van associatief geheugen en stelt HDAC1 specifiek voor als een potentieel therapeutisch doelwit voor SAD.
REFERENTIES
dsDemyttenaere K, Bruffaerts R, Posada-Villa J, Gasquet I, Kovess V, Lepine JP, et al. Prevalentie, ernst en onvervulde behoefte aan behandeling van psychische stoornissen in de World Mental Health Surveys van de Wereldgezondheidsorganisatie. J Am Med Assoc. 2004;291:2581–90.
2. Blanco C, Bragdon LB, Schneier FR, Liebowitz MR. De evidence-based farmacotherapie van sociale angststoornis. Int J Neuropsychopharmacol. 2013; 16: 235–49.
3. Scholten WD, Batelaan NM, van Balkom AJ, Wjh Penninx B, Smit JH, van Oppen P. Herhaling van angststoornissen en de voorspellers ervan. J Affectstoornis. 2013; 147: 180–5.
4. Bouton MIJ. Context, tijd en geheugenherstel in de interferentieparadigma's van Pavloviaans leren. Psychol Stier. 1993; 114: 80–99.
5. Bruce SE, Yonkers KA, Otto MW, Eisen JL, Weisberg RB, Pagano M, et al. Invloed van psychiatrische comorbiditeit op herstel en herhaling van gegeneraliseerde angststoornis, sociale fobie en paniekstoornis: een prospectief onderzoek van 12- jaar. Ben J Psychiatrie. 2005; 162: 1179–87.
6. Boschen MJ, Neumann DL, Waters AM. Terugval van succesvol behandelde angst en angst: theoretische kwesties en aanbevelingen voor de klinische praktijk. Aust NZJ Psychiatrie. 2009; 43: 89–100.
7. Leung HT, Westbrook RF. Spontaan herstel van uitgedoofde angstreacties verdiept hun uitdoving: een rol voor foutcorrectiemechanismen. J Exp Psychol Anim-gedragsproces. 2008;34:461–74.
8. Toth I, Neumann ID, Slattery DA. Sociale angstconditionering: een nieuw en specifiek diermodel om sociale fobie te bestuderen. Neuropsychofarmacologie. 2012;37:1433–43.
9. Toth I, Neumann ID, Slattery DA. Sociale angstconditionering als diermodel van sociale angststoornis. Curr Protoc Neurosci. 2013;63:9–42.
10. Zoicas I, Slattery DA, Neumann ID. Hersenoxytocine bij conditionering van sociale angst en het uitsterven ervan: betrokkenheid van het laterale septum. Neuropsychofarmacologie. 2014;39:3027–35.
11. Menon R, Grund T, Zoicas I, Althammer F, Fiedler D, Biermeier V, et al. Oxytocine-signalering in het laterale septum voorkomt sociale angst tijdens de borstvoeding. Curr Biol. 2018;28:1066–78.e1066.
12. Menon R, Suss T, Oliveira VEM, Neumann ID, Bludau A. Neurobiologie van het laterale septum: regulering van sociaal gedrag. Trends Neurowetenschappen. 2022; 45: 27–40. 13. Bludau A, Royer M, Meister G, Neumann ID, Menon R. Epigenetische regulatie van het sociale brein. Trends Neurowetenschappen. 2019;42:471–84.
14. Levenson JM, Sweatt JD. Epigenetische mechanismen bij geheugenvorming. Nat Rev Neurosci. 2005;6:108–18.
15. Mahgoub M, Monteggia LM. Een rol voor histondeacetylasen in de cellulaire en gedragsmechanismen die ten grondslag liggen aan leren en geheugen. Leer Mem. 2014;21:564–8.
For more information:1950477648nn@gmail.com