Klein maar krachtig: exosomen, nieuwe intercellulaire boodschappers in neurodegeneratie, deel 2
Jun 05, 2024
Differentiële ultracentrifugatie: De ultracentrifugatiemethode wordt lange tijd beschouwd als de 'gouden standaard' voor exosoomisolatie [10,78] en is de meest gebruikte methode. Johnston en collega's rapporteerden voor het eerst ultracentrifugatie om exosomen te isoleren uit het kweekmedium van reticulocyten [10].
Er lijkt geen direct verband te bestaan tussen differentiële ultracentrifugatie en geheugen, maar er zijn wel enkele indirecte verbanden tussen beide.
Ten eerste kan differentiële ultracentrifugatie ons helpen een gezond lichaam en gezonde hersenen te behouden, waardoor ons geheugen wordt verbeterd. Studies hebben aangetoond dat lichaamsbeweging de verbindingen tussen neuronen in de hersenen kan bevorderen en de hersenfunctie, inclusief het geheugen, kan verbeteren. Als trainingsmethode met hoge intensiteit kan differentiële ultracentrifugatie de cardiovasculaire gezondheid, spierkracht en uithoudingsvermogen bevorderen, wat ons geheugen verder kan bevorderen.
Ten tweede kan differentiële ultracentrifugatie ons helpen stress te verminderen en de stemming te verbeteren, wat ook een positief effect heeft op het geheugen. Wanneer we ons nerveus, angstig of gestrest voelen, geven onze hersenen een aantal negatieve emotionele chemicaliën vrij, die ons geheugen en cognitieve vermogen kunnen beïnvloeden. Door differentiële ultracentrifugatieoefeningen kunnen we stress in het lichaam loslaten en de uitscheiding van neurotransmitters in de hersenen bevorderen, waardoor onze stemming en cognitieve vaardigheden verbeteren.
Bovendien kan differentiële ultracentrifugatie ons helpen ons zelfvertrouwen en onze eigen effectiviteit te vergroten, wat ook tot uiting kan komen in het verbeteren van ons geheugen. Wanneer we ons zelfverzekerd en succesvol voelen, geven onze hersenen een aantal positieve emotionele chemicaliën vrij, die onze cognitieve vaardigheden en ons geheugen kunnen verbeteren. Door oefeningen zoals differentiële ultracentrifugatie kunnen we ons atletische niveau en fysieke vermogen verbeteren, ons zelfvertrouwen en onze eigen effectiviteit vergroten en zo effectiever zijn in het verbeteren van het geheugen.
Over het algemeen bestaat er geen directe correlatie tussen differentiële ultracentrifugatieoefeningen en het geheugen, maar er zijn wel enkele indirecte verbanden daartussen. Door te sporten, stress te verminderen, het humeur te verbeteren en het zelfvertrouwen te vergroten, kunnen we ons geheugen en cognitieve vermogen verbeteren, terwijl we tegelijkertijd fysieke en mentale gezondheidsvoordelen opleveren. Daarom is differentiële ultracentrifugatie een positieve manier van oefenen die meer voordelen kan opleveren voor onze fysieke en mentale gezondheid en ons geheugen. Het is duidelijk dat we het geheugen moeten verbeteren, en Cistanche kan het geheugen aanzienlijk verbeteren omdat Cistanche antioxiderende, ontstekingsremmende en anti-verouderingseffecten heeft, die kunnen helpen oxidatieve en ontstekingsreacties in de hersenen te verminderen, waardoor de gezondheid van de hersenen wordt beschermd. zenuwstelsel. Bovendien kan Cistanche de groei en het herstel van zenuwcellen bevorderen, waardoor de connectiviteit en functie van neurale netwerken wordt verbeterd. Deze effecten kunnen het geheugen, het leervermogen en de denksnelheid helpen verbeteren, en kunnen ook het optreden van cognitieve stoornissen en neurodegeneratieve ziekten voorkomen.

Klik op supplementen kennen om het geheugen te verbeteren
Deze techniek is gebaseerd op het gebruik van centrifugale krachten om deeltjes opeenvolgend te scheiden op basis van hun grootte en dichtheid. Grotere en dichtere deeltjes vereisen lage centrifugale krachten om eerst te sedimenteren [44,84].
Afhankelijk van de aard van het monster verwijdert de eerste centrifugatie op lage snelheid bij 300–2000× drijvende cellen, de, ad en apoptotisch. Centrifugatie met hogere snelheid bij 10.000× verwijdert grote blaasjes en celresten.
Exosomen worden neergeslagen door ultracentrifugatie bij 100,000× g. De efficiëntie van exosoomisolatie hangt af van verschillende factoren, waaronder versnelling (g), het gebruikte type rotor en de kenmerken ervan (k-factor, rotatiestraal) en de eindviscositeit van het uitgangsmonster. De efficiëntie van exosoomsedimentatie neemt af met verhoogde viscositeit.
Daarom vereist de isolatie van exosomen uit serum/bloed centrifugatiestappen met hogere snelheid gedurende een langere duur in vergelijking met exosoomisolatie uit celkweekmedium. Afhankelijk van de gebruikte rotor kunnen relatief grote monstervolumes worden verwerkt. Ultracentrifugatie voor exosoomisolatie vereist minimale reagentia en verbruiksartikelen en heeft een goede reproduceerbaarheid, maar vereist meer tijd en dure apparatuur.
Het potentieel van het pelleteren van eiwitaggregaten en andere niet-exosomale deeltjes heeft geleid tot het gebruik van gradiënt-ultracentrifugatie die exosoomisolatie mogelijk maakt op basis van hun drijvende dichtheid.
Sucrose, Iohex,ol en iodixanol worden over het algemeen gebruikt voor isopycnische centrifugatie [85,86]. Deze methode is tijdrovend, vereist het gebruik van een klein monstervolume omdat roterende buizen niet overbelast kunnen worden, en levert een kleine hoeveelheid pure bereiding van exosomen op.
Ultrafiltratie: Deze methode is gebaseerd op het gebruik van hydrofiele poreuze membranen met een gedefinieerde grenswaarde voor de poriën of het molecuulgewicht om deeltjes met een specifieke grootte of massa op te vangen. Monsters zoals kweekmedium of biologische vloeistoffen worden achtereenvolgens gefilterd door membranen met afnemende poriegrootte. Hierdoor kunnen grote deeltjes bij elke filtratiestap worden vastgehouden en wordt het retentaat verrijkt met specifieke deeltjesgroottes.
Exosomen worden door ultracentrifugatie uit het uiteindelijke retentaat gewonnen. Deze procedure is snel en heeft aan populariteit gewonnen [69]. Ultrafiltratie gaat gepaard met enkele tekortkomingen als gevolg van verstopping van het membraan en het vangen van exosomen, wat resulteert in een matige exosoomopbrengst. De pureFoutieve filtratie kan exosomen beschadigen. Grootte-uitsluitingschromatografie: Het principe van deze methode is gebaseerd op eiwitzuivering door chromatografie.
De kolommen zijn gevuld met poreuze polymeerkralen of hars zoals Sephacryl S-1000, Sepharose 2B en Sepharose CL-2B [71,83–89]. Wanneer het monster op de kolom wordt geladen, loopt het door de hars. Grotere deeltjes reizen door de kolom omdat ze te groot zijn om de hars binnen te dringen en als eerste worden geëlueerd (ook wel doorstroom genoemd).
Kleine deeltjes die de poreuze hars binnendringen, worden geëlueerd door buffer door de kolom te leiden. Deze scheiding is strikt gebaseerd op de grootte of molecuulmassa en dus op alle zuivering van subpopulaties van exosomen. Uitsluiting van groottechromatografie is een snelle en reproduceerbare methode die de integriteit van exosomen niet verstoort. Het enige voorbehoud bij deze methode is dat een klein deel van het lipoproteïne-cholesterol en de eiwitten met hoge dichtheid samen elueert met exosomen [87].
Aanvullende zuivering door dichtheidsgradiëntcentrifugatie is vereist om eiwitaggregaten en lipiden te verwijderen om een zuiver exosoompreparaat te verkrijgen. Immunoaffiniteitsvangst: deze methode is gebaseerd op het gebruik van antilichamen tegen oppervlakte-eiwitten van exosomen zoals tetraspanine-eiwitten [78,90,91]. Magnetische kralen die covalent zijn gecoat met streptavidine worden geïncubeerd met gebiotinyleerde antilichamen tegen oppervlakte-eiwitten van exosomen, ook wel 'capture-antilichamen' genoemd.
Antilichaamcomplexen met magnetische kralen worden geïncubeerd, waarbij het onbegrensde monster wordt verwijderd door de kralen te magnetiseren. Gewassen kralen worden direct verwerkt voor stroomafwaartse toepassing zonder exosomen te elueren. Dit is een eenvoudig te gebruiken methode en biedt een pure voorbereiding van subpopulaties van exosomen. Deze methode mag echter niet routinematig worden gebruikt omdat antilichamen duur zijn en deze methode voorafgaande kennis van exosome oppervlakteproteïnen vereist en afhankelijk is van de beschikbaarheid van antilichamen ertegen.
Deze methode heeft problemen met de elutie van intacte exosomen. Als het eenmaal is vastgesteld, kan het echter worden gebruikt voor toepassingen zoals het screenen van tumor-exosomen in het plasma.
Naast magnetische kralen maken verschillende andere platforms, zoals zeer poreuze monolithische siliciummicrochips, plastic platen, cellulosefilters, membraanaffiniteitsfilters, een agarose-sorbens en microfluïdische apparaten, gebruik van op affiniteit gebaseerde exosoomzuivering. Microfluïdica-apparaat: de fysiochemische en biochemische kenmerken van exosomen worden benut op het nanoschaal.
Het microfluidics-apparaat vereist een klein monstervolume. Het monster wordt door microkanalen geleid en exosomen worden opgevangen met behulp van immunoaffiniteitsmethoden of insluiting door poreuze structuren [67], groottefiltratie, nanodraadtrapping, laterale verplaatsing, akoestische nanofiltratie en meer recentelijk visco-elastische stroomsortering [82].
Er is veel belangstelling voor deze apparaten. De benodigde reagentia zijn in microliterhoeveelheden aanwezig, zijn draagbaar en het proces van exosoomisolatie is zeer snel en efficiënt. Microfluïdische apparaten hebben dus het potentieel om te worden ontwikkeld voor snelle klinische screening en diagnose. Het enige nadeel van deze methode is de lage monstercapaciteit.
Flowcytometrie, asymmetrische flow-veldstroomfractionering, gradiënt-ultracentrifugatie en polymeerprecipitatie zijn enkele aanvullende methoden die zijn ontwikkeld voor exosoomzuivering [92-94].
Uit de samenvatting van de huidige isolatiemethoden blijkt dat geen enkele specifieke aanpak geschikt is voor alle exosoomisolatievereisten.
Standaardisatie van de methode die moet worden gebruikt voor exosoomisolatie is van cruciaal belang.

De optimale isolatiemethode zal afhangen van de aard van het monster, de hoeveelheid startmonstervolume en de stroomafwaartse toepassing. Een ideale isolatiemethode zou bij voorkeur eenvoudig moeten zijn en geen ingewikkelde of dure apparatuur vereisen. In een klinische setting moet exosome-isolatie schaalbaar, kosteneffectief en snel zijn.
Exosoomzuivering uit de hersenen: Exosomen zijn veelbelovend als klinische diagnostische markers voor ziekten en als prognostische biomarkers. De huidige exosoomisolatiemethoden uit biologische vloeistoffen, waaronder bloed, urine en hersenvocht, worden, hoewel niet zonder problemen, tamelijk routinematig uitgevoerd. Om het potentieel van exosomen volledig te benutten, moeten er echter methoden worden ontwikkeld voor het extraheren van exosomen uit vaste weefselsbij neurodegeneratieve ziekten is de primaire pathologie vaak gelokaliseerd in een aspecifiek hersengebied, maar toxische eiwitten verspreiden zich vervolgens naar andere hersengebieden. De huidige mechanismen van de verspreiding van toxische eiwitten naar andere hersengebieden zijn nog niet volledig begrepen. Exosomen zijn waarschijnlijke kandidaten omdat ze betrokken zijn bij intercellulaire communicatie. Het scenario dat exosomale lading verschilt in verschillende hersengebieden is zeer waarschijnlijk.
Daarom kan het isoleren van exosomen uit interessante brairegio's potentieel zeer informatief zijn. Een van de eerste rapporten over exosoomisolatie uit hersenweefsel kwam van Perez Gonzalezlez en collega's [95]. Ze zuiverden exosomen onafhankelijk van verse en bevroren muizenhersenen en bevroren menselijke hersenweefsels.
De isolatiemethode omvatte aanvankelijk een pijnbehandeling van het weefsel, gevolgd door filtratie om cellen en resten weg te gooien. Vervolgens werden de homogenaten onderworpen aan een reeks centrifugaties op lage snelheid, gevolgd door een reeks centrifugaties op hoge snelheid. Exosomen werden verder gezuiverd door fractionering op een sucrosegradiënt. Met behulp van dit protocol rapporteren de auteurs de isolatie van intacte exosomen uit hersenen [95].
Een vergelijkbare methode werd gebruikt door Vella en collega's, behalve dat het monster niet werd onderworpen aan filtratie [96]. De door deze onderzoeksgroep gebruikte methodologie resulteerde in de isolatie van exosomen die voldeden aan alle criteria voor de karakterisering van exosomen, wat een belangrijk hulpmiddel vormde voor neurowetenschappers. Een andere onderzoeksgroep koos voor een interessante en andere benadering van de isolatie van het xosoom.
Met het argument dat ultracentrifugatie "ongewenste oplosbare eiwitten en aggregaten" neerslaat, hebben Gallart-Palau en collega's verse muizenhersenen en bevroren menselijke frontale kwab gehomogeniseerd in 0.1M ammoniumacetaatbuffer aangevuld met antiproteasen.
Gepoolde supernatanten werden gemengd met vier delen gekoelde aceton om hydrofiele eiwitten en vergelijkbare weefselmacromoleculen neer te slaan, waardoor hydrofobe exosomen in oplossing achterbleven [97]. Naar onze mening zijn er verschillende nadelen aan deze methode verbonden. Ten eerste is het onwaarschijnlijk dat ammoniumacetaat een neutrale pH kan handhaven, aangezien de pKa van azijnzuur rond pH 4,75 ligt en de pKa van ammonium rond pH 9,25.
Hersenweefsel wordt dus gehomogeniseerd met behulp van een buffer met een onstabiele pH en dit kan de lading van macromoleculen beïnvloeden [98].
Ten tweede kan aceton, hoewel aceton hydrofiele eiwitten en andere hydrofiele moleculen kan scheiden van supernatanten, de fosfolipidendubbellaag veranderen, terwijl we als derde de vloeibaarheid van het plasmamembraan verhogen, wat wijst op willekeurige lekkage van de inhoud van het exosoom [99].
3. Rol van exosomen in het centrale zenuwstelsel (CZS)
Ingewikkelde interacties tussen neuronen en glia zijn een voorwaarde voor de normale functie van het zenuwstelsel (Figuur 4) [100]. Communicatie in het CZS is beschreven als multimodaal en onderverdeeld in bedradingstransmissie (op-één transmissie) en volumetransmissie-naar-veel transmissie) [101].
De bekabelde transmissie omvat neurotransmissie via elektrische en chemische synapsen die de overdracht van kleine moleculen en ionen via gap-junctions bewerkstelligen. Volumetransmissie daarentegen wordt vergemakkelijkt door paracriene transmissie van signalen via de interstitiële ruimte of het hersenvocht. De afgelopen jaren werd echter duidelijk dat exosomen bijdragen aan de intercellulaire communicatie in het centrale zenuwstelsel [102].
Exosomen vervullen hun rol als cel-celcommunicatoren door hun effecten via verschillende mechanismen uit te oefenen. Exosomen kunnen signaaltransductiecascades initiëren via activering van oppervlaktereceptoren of door het afleveren van hun lading nucleïnezuren, eiwitten, lipiden en andere kleine moleculen, wat leidt tot functionele gevolgen in ontvangende cellen.
De afgifte en opname van exosoom zijn bidirectioneel, waardoor de coördinatie van biologische gebeurtenissen mogelijk is. Exosomen worden vrijgegeven door alle cellen in het CZS, inclusief microglia, oligodendrocyten, astrocyten, tes en neuronen. [103] De vrijgave van exosomen wordt over het algemeen gecontroleerd door neurotransmittersignalering in de hersenen.
Blootstelling aan de prikkelende neurotransmitter glutamaat stimuleert de afgifte van exosomen door volwassen corticale en hippocampale neuronen die in vitro worden gekweekt. Omgekeerd keren AMPA-receptor- of NMDA-receptorantagonisten de excitatoire activiteit om met een verminderde exosoomoutput. Deze gegevens suggereren dat de afgifte van exosoom wordt gemoduleerd door exciterende synaptische activiteit.
Bovendien wordt de afgifte van exosoom vergemakkelijkt door neuronale depolarisatie en calciuminstroom na behandeling met de calciumionofoor, ionomycine [49]. Adenosinetrifosfaat (ATP), dat vrijkomt bij synapsen, werkt als co-transmitter-activerende gliale purinerge receptoren.
ATP bevordert de afgifte van exosoom door astrocyten en microgliale cellen. Het associëren van de afgifte van exosoom met de afgifte van neurotransmitters suggereert dat deze biologische nanodeeltjes bij voorkeur gelokaliseerd kunnen zijn in hersengebieden met hoge neuronale activiteit, mogelijk als gevolg van de grotere vraag naar intercellulaire communicatie en coördinatie van cellulaire activiteit in deze regio’s.het gedetailleerde verslag van cel-cellulaire communicatie via exosomen [52,53,104–108]. Tabel 2 geeft een korte samenvatting van de rol van exosomen in de intercellulaire communicatie in de hersenen. Hieronder beschrijven we kort exosoom-gemedieerde intercellulaire communicatie tussen hersencellen.
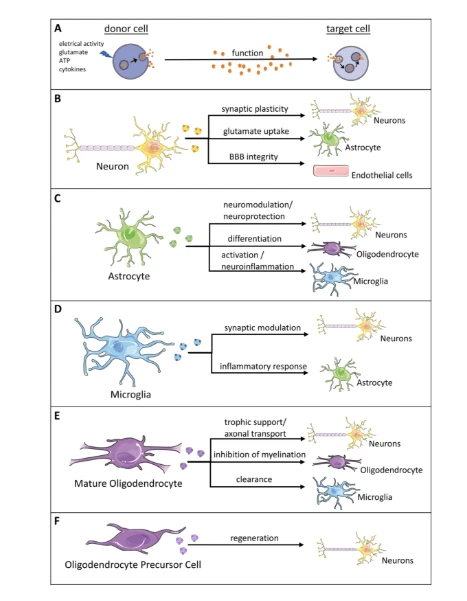
Figuur 4. Exosoom-gemedieerde intercellulaire communicatie tussen hersencellen. Exosomen van een oudercel kunnen verschillende doelcellen (of ontvangercellen) in de hersenen hebben om het behoud van de homeostase te garanderen. (A) De afgifte van exosomen in het centrale zenuwstelsel vindt plaats als reactie op signalen van neurotransmitters en wordt daarom gecontroleerd door elektrische activiteit.
Blootstelling aan kaliumchloride depolariseert bijvoorbeeld neuronen, vaak bekend als elektrisch actieve neuronen. Gedepolariseerde neuronen geven glutamaat vrij dat zich bindt aan AMPA- en NMDA-receptoren op oligodendrocyten en deze stimuleert. Activering van glutamaatreceptoren verhoogt de intracellulaire calciumspiegels in oligodendrocyten. Een toename van intracellulair calcium induceert de afgifte van exosomen door oligodendrocyten [109].
ATP-gemedieerde stimulatie van het P2-purinoceptorsubtype, P2X7, stimuleert de afgifte van exosoom door microglia [110] en astrocyten [111]. Serotonine stimuleert ook de afgifte van xosomen door microglia [112]. (B) Neuronen reguleren bepaalde functies van neuronen, astrocyten en endotheelcellen door middel van de afgifte van exosomen [113].
In het bijzonder elimineren neuronale exosomen synapsen en stimuleren ze fagocytose door microgliale cellen [114]. Neuronale exosomen die vrijkomen als reactie op synaptische activering, controleren de rolexpressie van glutamaattransportersastrocytencyten om extracellulaire glutamaatniveaus te reguleren [115]. (C) Van astrocyten afkomstige exosomen moduleren de neuronale functie en oefenen een neuroprotectieve rol uit.
Astrocyten-exosomen activeren microglia en spelen een belangrijke speler bij de differentiatie van oligodendrocyten. (D) Microgliale exosomen moduleren de synaptische functie van neuronen en communiceren met astrocyten om neuro-ontsteking te veroorzaken.
Microgliale exosomen kunnen zowel neuroprotectieve als neurodegeneratieve rollen bemiddelen die geassocieerd zijn met microglia. (E) Rijpe exosomen van oligodendrocyten bevorderen axonaal transport en helpen een schone micro-omgeving te behouden door communicatie via microglia en astrocyten. (F) Oligodendrocytvoorlopercel-afgeleide dexosomen helpen bij neuroregeneratie [116].

Aangepast met toestemming van Schnatz, A., Müller, C.,Brahmer, A., en Krämer-Albers, E.-M. (2021), Extracellulaire blaasjes in neurale celinteractie en homeostase van het centrale zenuwstelsel. FASEB BioAdvances, 3: 577–592 [100]. doi:10.1096/fba.2021-00035; Copyright© 2022 De auteurs.
FASEB BioAdvances gepubliceerd door de Federation of American Societies for Experimental Biology. Dit artikel met open toegang onder de voorwaarden van http://creativecommons.org/licenses/by-nc/4.0/License (3 maart 2022), dat gebruik, distributie en reproductie op elk medium toestaat, op voorwaarde dat het originele werk correct wordt geciteerd en niet voor commerciële doeleinden wordt gebruikt.
Van neuronen afkomstige exosomen: Gekweekte neuronen van muizen- en menselijke oorsprong, en neurale stamcellen geven exosomen vrij [92,117,118].
Een interessante observatie werd gedaan door Chivetand-collega's tijdens het bestuderen van exosomen die vrijkwamen door neuroblastoomcellen. Ze observeerden celspecifieke internalisatie van exosomen.
Exosomen van neuroblastoomcellen werden gemakkelijk geëndocyteerd door astrocyten en oligodendrocyten, maar in veel mindere mate door hippocampale neuronen. Exosomen die door neuronen vrijkomen als reactie op synaptische activiteit, werden daarentegen alleen opgenomen door neuronen, wat een hoge specificiteit van exosoom-gemedieerde communicatie tussen hersencellen suggereert [119].
Van neuronen afgeleide exosomen zijn gespeculeerd om deel te nemen aan synaptische plasticiteit door verouderde eiwitten en RNA te verwijderen. Dit wordt bereikt door de fagocytische functie van microglia te activeren [120]. Door kalium geïnduceerde depolarisatie van gekweekte menselijke neuroblastoomcellen maakt exosomen vrij die verrijkt zijn met een reeks activiteitsgerelateerde miRNA's en het synaptische eiwit MAP1b.
Het MAP1b-eiwit is overvloedig aanwezig in axon-groeikegels en dendritische spins en wordt geassocieerd met synaptische plasticiteit [121]. Depolarisatie stimuleert de opname van soma-dendritische exosomen door naburige synapsen.
Geïnternaliseerde exosomen vergemakkelijken synaptische sterkte door snel mRNA's te vertalen die relevant zijn voor synaptische activiteit in het postsynaptische gebied [121]. Aanvullende ondersteuning voor de rol van exosomen bij het moduleren van neurotransmissie wordt geleverd door onderzoeken waarbij gebruik wordt gemaakt van primaire embryonale corticale neuronen die exosomen vrijgeven die twee microRNA's bevatten, Let-7c en miR-21.
Deze microRNA's zijn liganden voor de Toll-like receptor 7 (Tlr7). Activering van de Toll-likereceptor 7 speelt een negatieve rol bij axonale en dendritische groei. Incubatie van neuronen met Let-7c en miRhurtt op dendritische groei in normale neuronen en dit effect werd uitgewist in neuronen van Tlr7(−/−) knock-out muizen [122].
Het is dus redelijk om aan te nemen dat neuronale exosomen de neurotransmissie kunnen moduleren door de groei van neurieten tijdens de neurologische ontwikkeling te reguleren. Synaptogenese en synapsonderhoud worden ook beïnvloed door exosomen.
Het prolinerijke transmembraaneiwit PRR7 wordt op een activiteitsafhankelijke manier door neuronen vrijgegeven via exosomen. Internalisatie van PRR7-bevattende exosomen door naburige neuronen vermindert hun aantal exciterende synapsen.
Vermindering van exciterende synapsen wordt bereikt door GSk3 te activeren, proteasomale afbraak van PSD-eiwitten te stimuleren en tegelijkertijd de exosomale secretie van Wnts te remmen [123]. Exosomen zijn dus van invloed op de communicatie tussen neuron-neuronen en neuron-gliale verbindingen. Van astrocyten afkomstige exosomen: Astrocyten vertegenwoordigen het meest voorkomende gliale celtype in de hersenen.
Ze zijn van cruciaal belang voor het behoud van de homeostase van de hersenen en bieden vitale functies zoals neurotrofe ondersteuning, modulatie van synaptische activiteit en plasticiteit [124,125].
Astrocytische processen onderhouden contact met bloedcapillairen in de hersenen en dragen bij aan het in stand houden van de bloed-hersenbarrière [126]. Naast het vervullen van deze vitale rollen functioneren astrocyten als immunocompetente cellen in het centrale zenuwstelsel.
Afhankelijk van de context kan astrocytenactiviteit ontstekingsreacties verergeren of immuunsuppressie en weefselherstel bevorderen. Op plaatsen waar het CZS-weefsel beschadigd is, vormen reactieve astrocyten littekens die effectief dienen als functionele barrières voor ontstekingscellen, waardoor de ontsteking van het CZS onder controle wordt gehouden [127]. Reactieve astrocyten geven neurotoxische stoffen en ontstekingsmoleculen vrij, zoals cytokinen en chemokinen.
Sommige van deze functies van astrocyten worden gedeeltelijk vergemakkelijkt door het vrijgeven van exosomen. Bovendien verleent het verzamelen van bewijsmateriaal geloofwaardigheid aan het idee dat de neuroprotectieve rol van astrocyten wordt gemedieerd via exosomen. In vitro gekweekte astrocyten van ratten geven exosomen vrij die neuroprotectieve en neurotrofe factoren bevatten.
In het bijzonder waren astrocytische exosomen verrijkt met fibroblastgroeifactor 2 en vasculaire endotheliale groeifactor [128]. Beide zijn angiogene moleculen en bemiddelen in proliferatie, axonale regeneratie, neurogenese en synaptische plasticiteit [129,130]. Stress veroorzaakt de opname van het glycolytische enzym aldolase C in astrocytische exosomen [131].
Verhoogde niveaus van aldolaseC veroorzaken niet alleen de expressie van miR-26a-5p in astrocyten, maar zorgen ook voor aanzienlijk verhoogde niveaus van miR-26a-5p in exosomen. Internalisatie van astrocytische exosomen met verhoogde niveaus van miR-26a-5p verlaagde de MAP2- en GSk3-eiwitniveaus in hippocampalneuronen, resulterend in een verminderde dendritische complexiteit [132].
Blootstelling van primaire corticalastrocytculturen van ratten aan pro-inflammatoire cytokinen, I, L1 en TNF, resulteerde in de afgifte van exosomen verrijkt met miRNA's die zich richten op eiwitten die betrokken zijn bij neurotropinesignalering.
In het bijzonder richtten miR-125a-5p en miR-16-5p zich op NTKR3 en zijn stroomafwaartse effectorBcl2. Downregulatie van Bcl2 in neuronen veroorzaakte een vermindering van de dendritische groei en complexiteit [133]. Astrocyten reageren dus op ontstekingsproblemen door de expressie te moduleren van eiwitten die betrokken zijn bij synaptische stabiliteit en neuronale prikkelbaarheid.
Een vermindering van de neuronale activiteit kan een positieve invloed hebben op de neuronale overleving na een aanval. Exosomen die door astrocyten worden afgegeven als reactie op intracerebrale injectie van IL-1 imicese komen in de perifere circulatie terecht en bevorderen de rekrutering van perifere leukocyten. Deze gegevens suggereren dus dat exosomen de communicatie tussen hen en de antheperiferie overbruggen [134].
Van oligodendrocyten afgeleide exosomen: snelle en betrouwbare voortplanting van actiepotentiaal langs axonen hangt af van de myelinisatie van neuronen. Oligodendrocyten omhullen meerdere axonen. Encanto vernieuwt de myelineschede drie keer in 2 uur en uur135. Myeline is bijzonder verrijkt aan lipiden, maar telt wel verschillende eiwitten die een integraal onderdeel zijn van de vorming van myeline.
Belangrijke myeline-eiwitten omvatten proteolipide-eiwit (PLP), myelinebasisch eiwit (MBP), myeline-geassocieerd glycoproteïne (MAG) en 30-cyclisch nucleotide30-fosfodiësterase (CNP) [136]. Twee eiwitten, PLP en MBP, zijn verspreid binnen de myelineschede en spelen een belangrijke rol in het verdichtingsproces dat resulteert in de dicht bij elkaar gelegen meerlaagse structuur van myeline.
Naast hun belangrijke functie bij de productie van myeline, bieden oligodendrocyten trofische ondersteuning aan axonen en zijn daarom essentieel voor de axonale integriteit [137]. Communicatie tussen oligodendrocyten en neuronsis is van cruciaal belang om deze belangrijke functie te bereiken. Recente onderzoeken tonen aan dat oligodendrocyteexosomen door neuronen worden geïnternaliseerd om trofische ondersteuning van axonen mogelijk te maken.
Net als bij neuronen is de afgifte van exosomen door oligodendrocyten afhankelijk van de activiteit. De neurotransmitterglutamaat die vrijkomt door actieve neuronen stimuleert een toename van intracellulaire calciuminoligodendroglia via NMDA- en AMPA-receptoren.
Verhoogde cytosolische Ca2+ triggeren de secretie van CN-P en PLP-verrijkte exosomen door oligodendrocyten. Eenmaal vrijgegeven, worden exosomen geïnternaliseerd door neuronen die een directe tweerichtingsinteractie tussen oligodendrocyten en neuronen voltooien [109,138].
In vitro-onderzoeken met gekweekte neuronen hebben verder aangetoond dat exosomen die vrijkomen door oligodendrocyten de neuronale overleving verhogen onder omstandigheden van celstress [109]. In een uitbreiding van deze onderzoeken hebben Frühbeis en collega's aangetoond dat CNP- en PLP-deficiënte muizen een verminderde exosoomafgifte uit oligodendrocyten vertoonden [139].
Belangrijk is dat oligodendrocyten geïsoleerd en gekweekt uit CNP-mutante muizen of PLP-mutante muizen een vermindering van de exosoomafgifte vertoonden, waardoor de communicatie van oligodendrocytesneuronen werd verstoord.

Gebrek aan communicatie tussen oligodendrocyten en neuronen via exosomen resulteerde in axonale degeneratie en verminderde metabolietenondersteuning voor neuronen [139]. Deze waarnemingen suggereren dat exosomen van oligodendrocyten een belangrijke bijdrage leveren aan het behoud van neuronale homeostase.
For more information:1950477648nn@gmail.com